

96
CINÉTIQUE ENZYMATIQUE
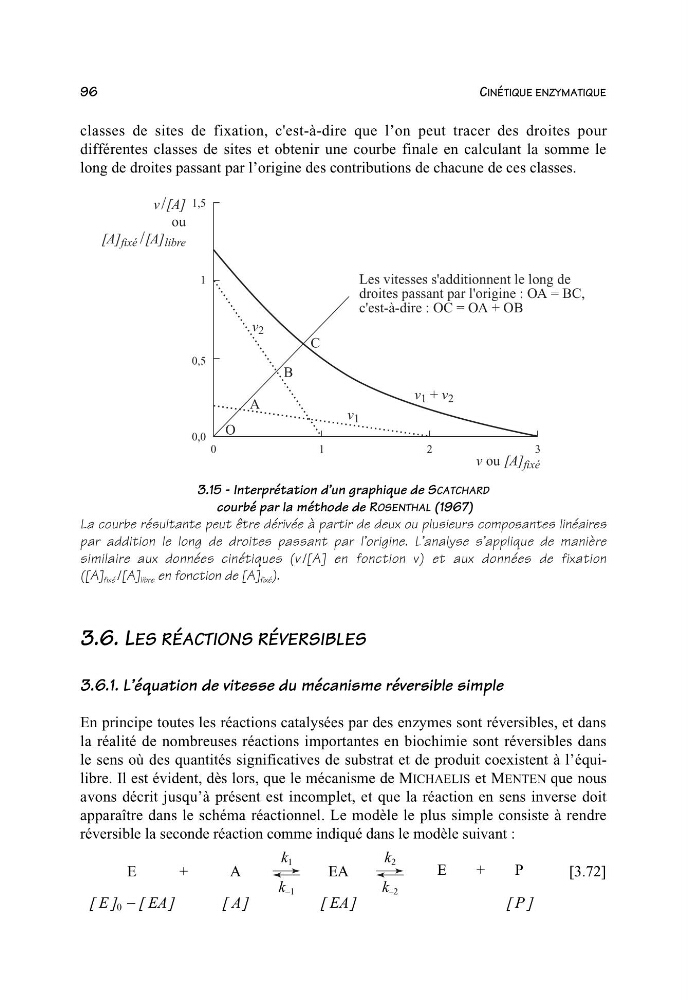
classes de sites de fixation, c'est-à-dire que l’on peut tracer des droites pour
différentes classes de sites et obtenir une courbe finale en calculant la somme le
long de droites passant par l’origine des contributions de chacune de ces classes.
v/[A]
ou
[A] fixé /[A] libre
1
0,5
0,0
1,5
Les vitesses s'additionnent le long de
droites passant par l'origine : OA = BC,
c'est-à-dire : OC = OA + OB
v ou [A] fixé
2
1
0
3
C
B
A
O
v 2
v 1 + v 2
v 1
3.15 - Interprétation d’un graphique de SCATCHARD
courbé par la méthode de ROSENTHAL (1967)
La courbe résultante peut être dérivée à partir de deux ou plusieurs composantes linéaires
par addition le long de droites passant par l’origine. L’analyse s’applique de manière
similaire aux données cinétiques (v /[A] en fonction v) et aux données de fixation
([A] fixé /[A] libre en fonction de [A] fixé ).
3.6. LES RÉACTIONS RÉVERSIBLES
3.6.1. L’équation de vitesse du mécanisme réversible simple
En principe toutes les réactions catalysées par des enzymes sont réversibles, et dans
la réalité de nombreuses réactions importantes en biochimie sont réversibles dans
le sens où des quantités significatives de substrat et de produit coexistent à l’équilibre. Il est évident, dès lors, que le mécanisme de MICHAELIS et MENTEN que nous
avons décrit jusqu’à présent est incomplet, et que la réaction en sens inverse doit
apparaître dans le schéma réactionnel. Le modèle le plus simple consiste à rendre
réversible la seconde réaction comme indiqué dans le modèle suivant :
k 1
k 2
E+A
EA
E+P
[3.72]
k –1
k –2
[] [
]
EE A
0 −
[] A
[] EA
[] P