

94
CINÉTIQUE ENZYMATIQUE
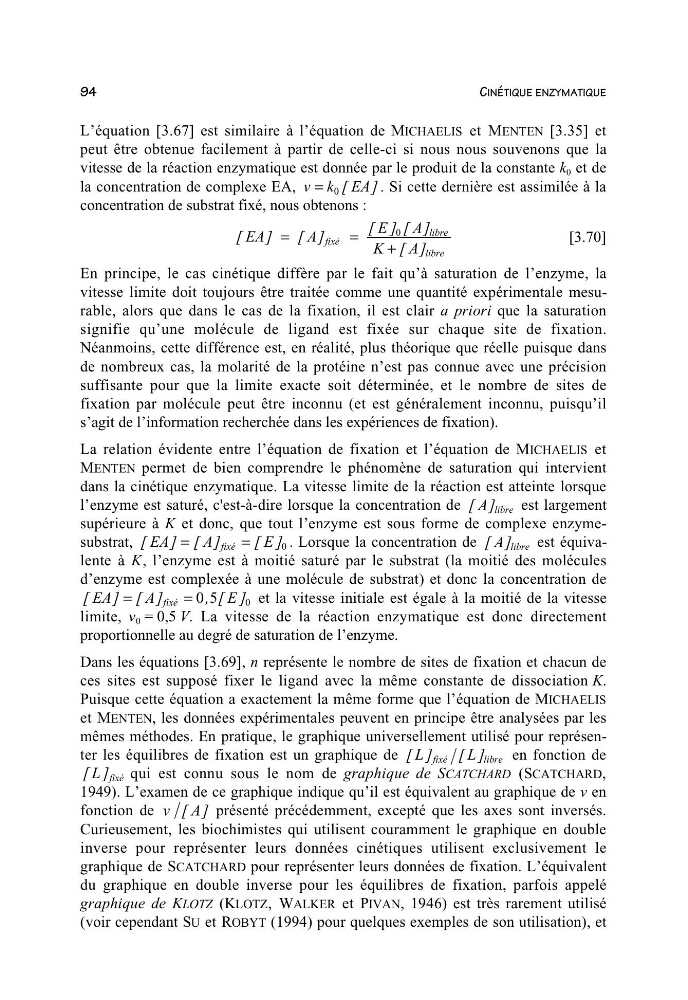
L’équation [3.67] est similaire à l’équation de MICHAELIS et MENTEN [3.35] et
peut être obtenue facilement à partir de celle-ci si nous nous souvenons que la
vitesse de la réaction enzymatique est donnée par le produit de la constante k 0 et de
la concentration de complexe EA, vkE A
= 0 [] . Si cette dernière est assimilée à la
concentration de substrat fixé, nous obtenons :
[][ ]
[] []
[]
EA
A
EA
KA
fixé
libre
libre
==
+
0
[3.70]
En principe, le cas cinétique diffère par le fait qu’à saturation de l’enzyme, la
vitesse limite doit toujours être traitée comme une quantité expérimentale mesurable, alors que dans le cas de la fixation, il est clair a priori que la saturation
signifie qu’une molécule de ligand est fixée sur chaque site de fixation.
Néanmoins, cette différence est, en réalité, plus théorique que réelle puisque dans
de nombreux cas, la molarité de la protéine n’est pas connue avec une précision
suffisante pour que la limite exacte soit déterminée, et le nombre de sites de
fixation par molécule peut être inconnu (et est généralement inconnu, puisqu’il
s’agit de l’information recherchée dans les expériences de fixation).
La relation évidente entre l’équation de fixation et l’équation de MICHAELIS et
MENTEN permet de bien comprendre le phénomène de saturation qui intervient
dans la cinétique enzymatique. La vitesse limite de la réaction est atteinte lorsque
l’enzyme est saturé, c'est-à-dire lorsque la concentration de [] A libre est largement
supérieure à K et donc, que tout l’enzyme est sous forme de complexe enzymesubstrat, [] [ ]
[ ]
EA
A
E
fixé
==
0 . Lorsque la concentration de [] A libre est équivalente à K, l’enzyme est à moitié saturé par le substrat (la moitié des molécules
d’enzyme est complexée à une molécule de substrat) et donc la concentration de
[] [ ]
, [ ]
EA
A
E
fixé
== 05
0 et la vitesse initiale est égale à la moitié de la vitesse
limite, v 0 = 0,5 V. La vitesse de la réaction enzymatique est donc directement
proportionnelle au degré de saturation de l’enzyme.
Dans les équations [3.69], n représente le nombre de sites de fixation et chacun de
ces sites est supposé fixer le ligand avec la même constante de dissociation K.
Puisque cette équation a exactement la même forme que l’équation de MICHAELIS
et MENTEN, les données expérimentales peuvent en principe être analysées par les
mêmes méthodes. En pratique, le graphique universellement utilisé pour représenter les équilibres de fixation est un graphique de []
[]
LL fixé
libre en fonction de
[] L fixé qui est connu sous le nom de graphique de SCATCHARD (SCATCHARD,
1949). L’examen de ce graphique indique qu’il est équivalent au graphique de v en
fonction de vA [] présenté précédemment, excepté que les axes sont inversés.
Curieusement, les biochimistes qui utilisent couramment le graphique en double
inverse pour représenter leurs données cinétiques utilisent exclusivement le
graphique de SCATCHARD pour représenter leurs données de fixation. L’équivalent
du graphique en double inverse pour les équilibres de fixation, parfois appelé
graphique de KLOTZ (KLOTZ, WALKER et PIVAN, 1946) est très rarement utilisé
(voir cependant SU et ROBYT (1994) pour quelques exemples de son utilisation), et