

3 – INTRODUCTION À LA CINÉTIQUE ENZYMATIQUE - RÉACTIONS À UN SUBSTRAT ET UN PRODUIT
69
concentration initiale d’enzyme [] E 0 qui constitue généralement un paramètre
contrôlable dans une expérience de cinétique enzymatique.
La deuxième règle consiste à utiliser l’équation de conservation de l’enzyme
pour exprimer l’équation [3.7] en fonction de la concentration initiale d’enzyme
et non de concentration d’enzyme libre. Dans le mécanisme de l’équation [3.3],
l’enzyme existe soit sous forme libre, soit sous forme complexée avec le substrat
EA et nous pouvons donc écrire :
[]
[][
]
EE
E A
0 =+
[3.8]
En combinant cette équation avec l’équation [3.6], nous obtenons :
[]
[]
[] []
[] (
[] )
EE
EA
K
E
A
K
aa
0
1
=+
=
+
[3.9]
qui fournit une expression de la concentration d’enzyme libre à partir de la
concentration initiale d’enzyme :
[]
[]
E
E
D
=
0
[3.10]
où DA K a
=+ 1 []
représente le dénominateur de l’équation [3.10]. Une fois
cette expression obtenue, nous pouvons l’introduire dans l’équation [3.7] :
vk
ED A
K a
=
(
)
2
0
[]
[]
[3.11]
A ce stade, la vitesse de la réaction n’est définie que si la concentration instantanée de substrat libre, [] A , peut être mesurée, ce qui nous amène à introduire
la troisième règle.
La troisième règle consiste à imposer une contrainte sur le système permettant de
connaître la concentration instantanée de substrat libre à partir de la concentration
initiale de substrat. En général, les enzymes sont étudiés dans des conditions où la
concentration d’enzyme [] E 0 est beaucoup plus faible que la concentration de
substrat [] A 0 . Ainsi, l’équation de conservation du substrat s’écrit comme suit :
[]
[][
]
AA
E A
0 =+
[3.12]
où nous pouvons négliger [] EA vis-à-vis de [] A . En se plaçant dans des conditions de vitesse initiale, nous pouvons donc assimiler la concentration instantanée
de substrat à la concentration initiale : [] []
AA 0 =
. Cette situation est valable
pour la majorité des études réalisées in vitro, mais il est important de noter qu’in
vivo la situation où [] []
EA 0 ≈
est très courante. Dans ce cas, [] EA ne peut
plus être négligé dans l’équation [3.12], et l’équation de vitesse prend une forme
plus complexe (voir ci-dessous).
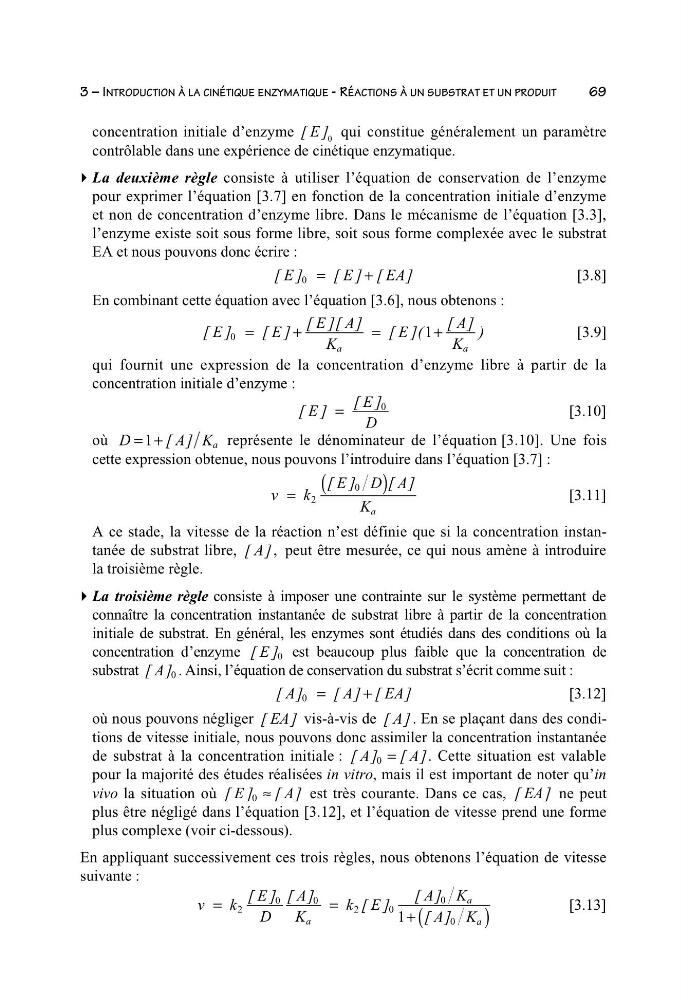
En appliquant successivement ces trois règles, nous obtenons l’équation de vitesse
suivante :
vk
E
D
A
K
kE
AK
AK
a
a
a
==
+ (
)
2
00
20
0
0
1
[] []
[]
[]
[]
[3.13]