

40
CINÉTIQUE ENZYMATIQUE
ou comme le rapport des constantes de vitesse de la réaction inverse et de la
réaction directe :
G
D
eq
ee
==
=
=
=
−
−°
−° − °
K
P
A
k
k
eq
eq
G
RT
RT
PA
[]
[]
()
1
1
mm
[2.42a]
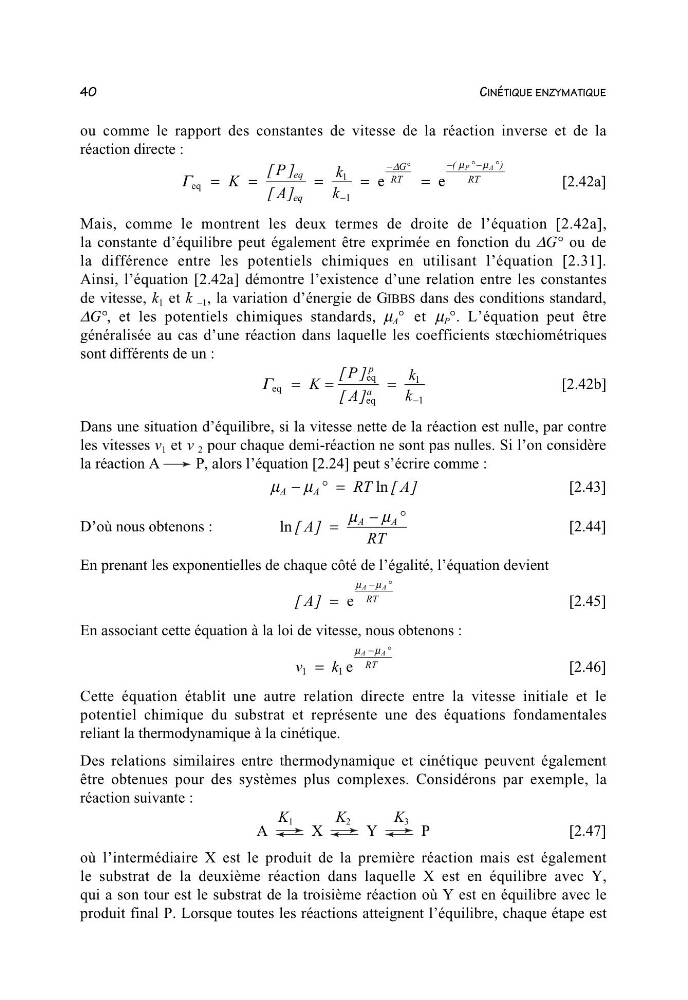
Mais, comme le montrent les deux termes de droite de l’équation [2.42a],
la constante d’équilibre peut également être exprimée en fonction du DG° ou de
la différence entre les potentiels chimiques en utilisant l’équation [2.31].
Ainsi, l’équation [2.42a] démontre l’existence d’une relation entre les constantes
de vitesse, k 1 et k –1 , la variation d’énergie de GIBBS dans des conditions standard,
DG°, et les potentiels chimiques standards, m A ° et m P °. L’équation peut être
généralisée au cas d’une réaction dans laquelle les coefficients stœchiométriques
sont différents de un :
G eq
eq
eq
==
=
−
K
P
A
k
k
p
a
[]
[]
1
1
[2.42b]
Dans une situation d’équilibre, si la vitesse nette de la réaction est nulle, par contre
les vitesses v 1 et v 2 pour chaque demi-réaction ne sont pas nulles. Si l’on considère
la réaction A
P, alors l’équation [2.24] peut s’écrire comme :
mm AA
RT
A
−° =
ln []
[2.43]
D’où nous obtenons :
ln [] A
RT
AA
=
−°
mm
[2.44]
En prenant les exponentielles de chaque côté de l’égalité, l’équation devient
[] A
AA
RT
=
−°
e
mm
[2.45]
En associant cette équation à la loi de vitesse, nous obtenons :
vk
AA
RT
11 =
−°
e
mm
[2.46]
Cette équation établit une autre relation directe entre la vitesse initiale et le
potentiel chimique du substrat et représente une des équations fondamentales
reliant la thermodynamique à la cinétique.
Des relations similaires entre thermodynamique et cinétique peuvent également
être obtenues pour des systèmes plus complexes. Considérons par exemple, la
réaction suivante :
K 1
K 2
K 3
A
X
Y
P
[2.47]
où l’intermédiaire X est le produit de la première réaction mais est également
le substrat de la deuxième réaction dans laquelle X est en équilibre avec Y,
qui a son tour est le substrat de la troisième réaction où Y est en équilibre avec le
produit final P. Lorsque toutes les réactions atteignent l’équilibre, chaque étape est