

378
CINÉTIQUE ENZYMATIQUE
mélange, par exemple par un second mélange avec un agent dénaturant comme
l'acide trichloroacétique, qui élimine rapidement l'activité enzymatique ; une autre
méthode consiste à refroidir très rapidement le mélange jusqu'à une température ou
la vitesse de réaction est négligeable ou même en congelant l'échantillon. En
variant le temps entre le mélange initial et l'arrêt de la réaction, il est possible
d'obtenir une série d'échantillons qui peuvent être analysés par des méthodes chimiques ou autres et à partir desquelles la courbe d'avancement de la réaction peut
être construite.
Moteur
ou
pression
Chambre
de mélange
Système de
"quenching"
Tube de longueur variable
Substrat
Enzyme
Remplissage
Remplissage
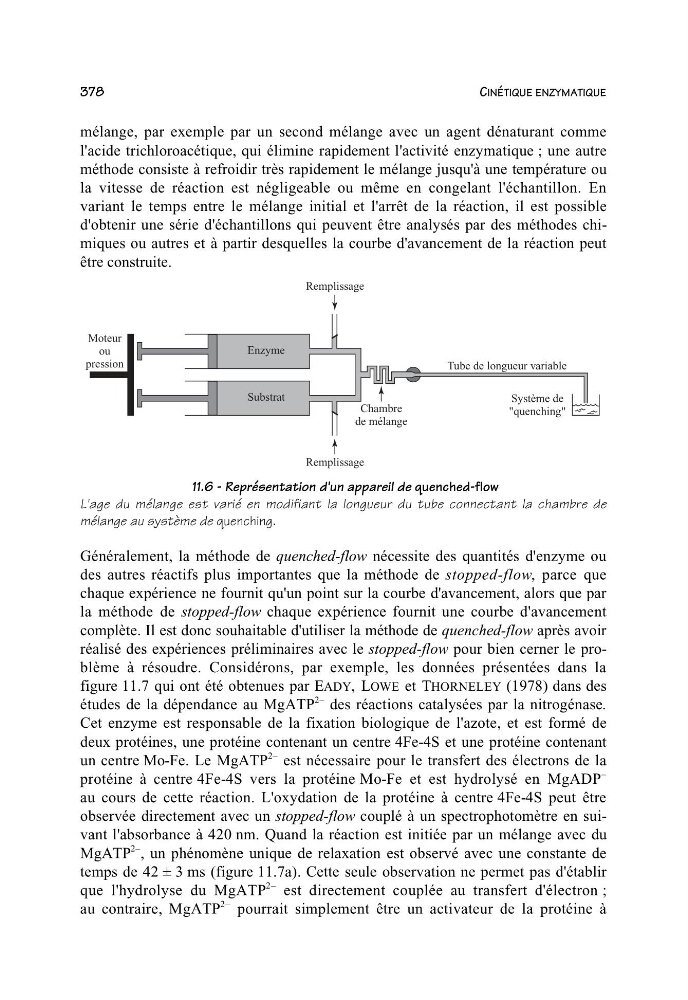
11.6 - Représentation d'un appareil de quenched-flow
L'age du mélange est varié en modifiant la longueur du tube connectant la chambre de
mélange au système de quenching.
Généralement, la méthode de quenched-flow nécessite des quantités d'enzyme ou
des autres réactifs plus importantes que la méthode de stopped-flow, parce que
chaque expérience ne fournit qu'un point sur la courbe d'avancement, alors que par
la méthode de stopped-flow chaque expérience fournit une courbe d'avancement
complète. Il est donc souhaitable d'utiliser la méthode de quenched-flow après avoir
réalisé des expériences préliminaires avec le stopped-flow pour bien cerner le problème à résoudre. Considérons, par exemple, les données présentées dans la
figure 11.7 qui ont été obtenues par EADY, LOWE et THORNELEY (1978) dans des
études de la dépendance au MgATP
2– des réactions catalysées par la nitrogénase.
Cet enzyme est responsable de la fixation biologique de l'azote, et est formé de
deux protéines, une protéine contenant un centre 4Fe-4S et une protéine contenant
un centre Mo-Fe. Le MgATP
2– est nécessaire pour le transfert des électrons de la
protéine à centre 4Fe-4S vers la protéine Mo-Fe et est hydrolysé en MgADP
–
au cours de cette réaction. L'oxydation de la protéine à centre 4Fe-4S peut être
observée directement avec un stopped-flow couplé à un spectrophotomètre en suivant l'absorbance à 420 nm. Quand la réaction est initiée par un mélange avec du
MgATP
2– , un phénomène unique de relaxation est observé avec une constante de
temps de 42 ± 3 ms (figure 11.7a). Cette seule observation ne permet pas d'établir
que l'hydrolyse du MgATP
2– est directement couplée au transfert d'électron ;
au contraire, MgATP
2– pourrait simplement être un activateur de la protéine à