

10 – CINÉTIQUES DES SYSTÈMES MULTI-ENZYMATIQUES
335
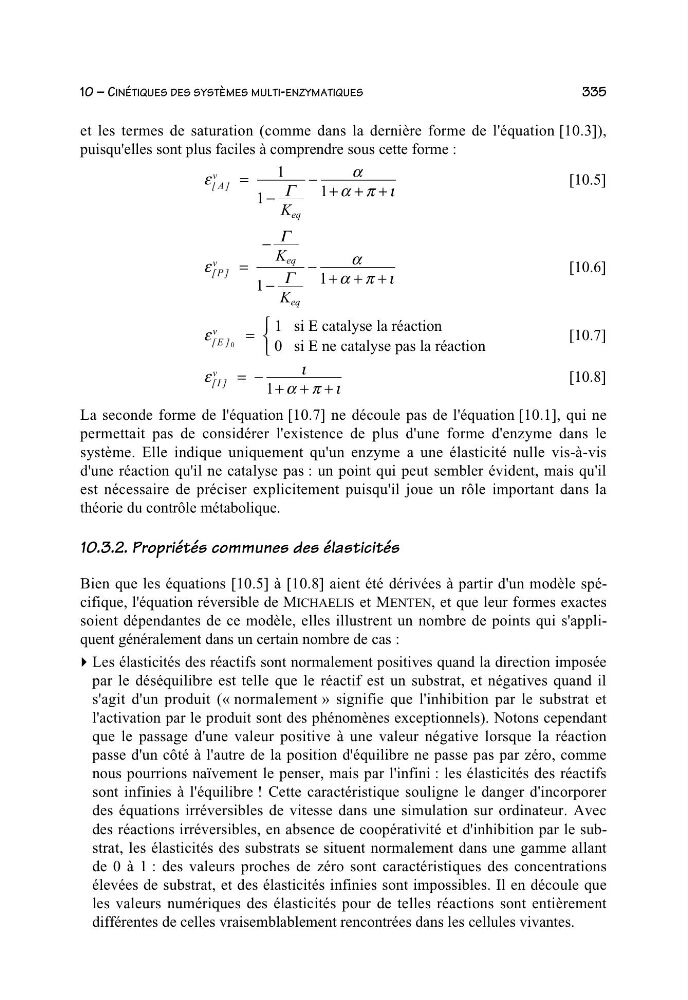
et les termes de saturation (comme dans la dernière forme de l'équation [10.3]),
puisqu'elles sont plus faciles à comprendre sous cette forme :
e
a
api
[] A
v
eq
K
=
−
− +++
1
1
1
G
[10.5]
e
a
api
[] P
v
eq
eq
K
K
=
−
−
− +++
G
G
1
1
[10.6]
e [] E
v
0
=
⎧
⎨
⎩
1 si E catalyse la réaction
0 si E ne catalyse pas la réaction
[10.7]
e
i
api
[] I
v
=− +++
1
[10.8]
La seconde forme de l'équation [10.7] ne découle pas de l'équation [10.1], qui ne
permettait pas de considérer l'existence de plus d'une forme d'enzyme dans le
système. Elle indique uniquement qu'un enzyme a une élasticité nulle vis-à-vis
d'une réaction qu'il ne catalyse pas : un point qui peut sembler évident, mais qu'il
est nécessaire de préciser explicitement puisqu'il joue un rôle important dans la
théorie du contrôle métabolique.
10.3.2. Propriétés communes des élasticités
Bien que les équations [10.5] à [10.8] aient été dérivées à partir d'un modèle spécifique, l'équation réversible de MICHAELIS et MENTEN, et que leur formes exactes
soient dépendantes de ce modèle, elles illustrent un nombre de points qui s'appliquent généralement dans un certain nombre de cas :
Les élasticités des réactifs sont normalement positives quand la direction imposée
par le déséquilibre est telle que le réactif est un substrat, et négatives quand il
s'agit d'un produit (« normalement » signifie que l'inhibition par le substrat et
l'activation par le produit sont des phénomènes exceptionnels). Notons cependant
que le passage d'une valeur positive à une valeur négative lorsque la réaction
passe d'un côté à l'autre de la position d'équilibre ne passe pas par zéro, comme
nous pourrions naïvement le penser, mais par l'infini : les élasticités des réactifs
sont infinies à l'équilibre ! Cette caractéristique souligne le danger d'incorporer
des équations irréversibles de vitesse dans une simulation sur ordinateur. Avec
des réactions irréversibles, en absence de coopérativité et d'inhibition par le substrat, les élasticités des substrats se situent normalement dans une gamme allant
de 0 à 1 : des valeurs proches de zéro sont caractéristiques des concentrations
élevées de substrat, et des élasticités infinies sont impossibles. Il en découle que
les valeurs numériques des élasticités pour de telles réactions sont entièrement
différentes de celles vraisemblablement rencontrées dans les cellules vivantes.