

304
CINÉTIQUE ENZYMATIQUE
v
V
A
K
A
KK
A
K
A
KK
=
+
++
[][]
[][]
1
2
12
1
2
12
1
2
[9.13]
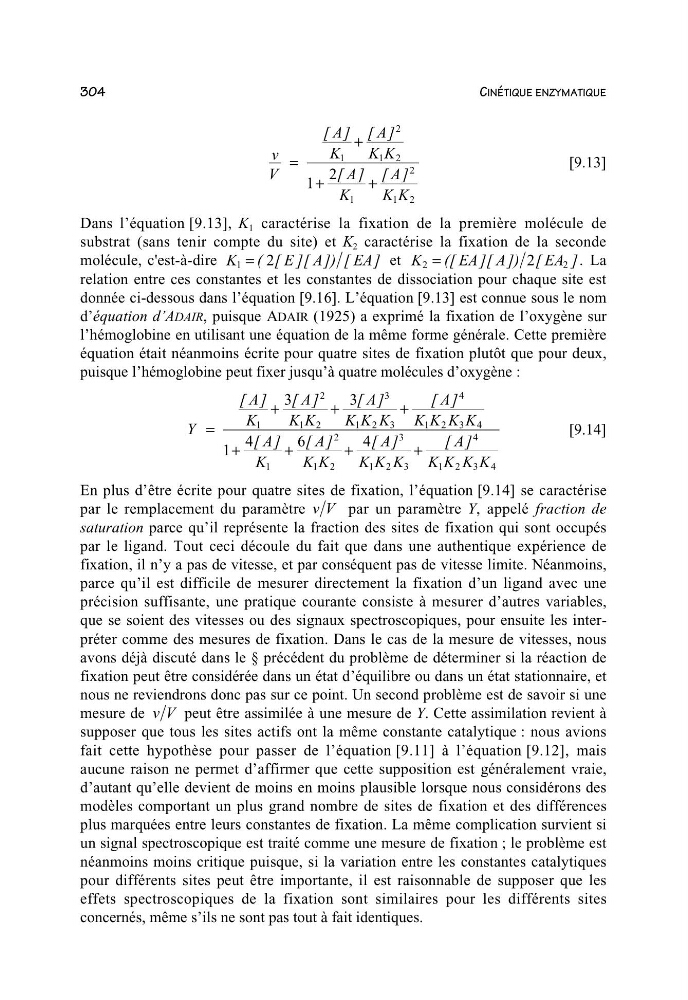
Dans l’équation [9.13], K 1 caractérise la fixation de la première molécule de
substrat (sans tenir compte du site) et K 2 caractérise la fixation de la seconde
molécule, c'est-à-dire KE A
E A
1
2
= ( [ ][ ]) [
] et KE A A
E A
22 2
= ([
][ ]) [
]. La
relation entre ces constantes et les constantes de dissociation pour chaque site est
donnée ci-dessous dans l’équation [9.16]. L’équation [9.13] est connue sous le nom
d’équation d’ADAIR, puisque ADAIR (1925) a exprimé la fixation de l’oxygène sur
l’hémoglobine en utilisant une équation de la même forme générale. Cette première
équation était néanmoins écrite pour quatre sites de fixation plutôt que pour deux,
puisque l’hémoglobine peut fixer jusqu’à quatre molécules d’oxygène :
Y
A
K
A
KK
A
KK K
A
KK KK
A
K
A
KK
A
KK K
A
KK KK
=
++
+
++
+
+
[]
[]
[]
[]
[]
[]
[]
[]
1
2
12
3
123
4
1234
1
2
12
3
123
4
1234
33
1
46
4
[9.14]
En plus d’être écrite pour quatre sites de fixation, l’équation [9.14] se caractérise
par le remplacement du paramètre vV par un paramètre Y, appelé fraction de
saturation parce qu’il représente la fraction des sites de fixation qui sont occupés
par le ligand. Tout ceci découle du fait que dans une authentique expérience de
fixation, il n’y a pas de vitesse, et par conséquent pas de vitesse limite. Néanmoins,
parce qu’il est difficile de mesurer directement la fixation d’un ligand avec une
précision suffisante, une pratique courante consiste à mesurer d’autres variables,
que se soient des vitesses ou des signaux spectroscopiques, pour ensuite les interpréter comme des mesures de fixation. Dans le cas de la mesure de vitesses, nous
avons déjà discuté dans le § précédent du problème de déterminer si la réaction de
fixation peut être considérée dans un état d’équilibre ou dans un état stationnaire, et
nous ne reviendrons donc pas sur ce point. Un second problème est de savoir si une
mesure de vV peut être assimilée à une mesure de Y. Cette assimilation revient à
supposer que tous les sites actifs ont la même constante catalytique : nous avions
fait cette hypothèse pour passer de l’équation [9.11] à l’équation [9.12], mais
aucune raison ne permet d’affirmer que cette supposition est généralement vraie,
d’autant qu’elle devient de moins en moins plausible lorsque nous considérons des
modèles comportant un plus grand nombre de sites de fixation et des différences
plus marquées entre leurs constantes de fixation. La même complication survient si
un signal spectroscopique est traité comme une mesure de fixation ; le problème est
néanmoins moins critique puisque, si la variation entre les constantes catalytiques
pour différents sites peut être importante, il est raisonnable de supposer que les
effets spectroscopiques de la fixation sont similaires pour les différents sites
concernés, même s’ils ne sont pas tout à fait identiques.