

8 – EFFETS DE L’ENVIRONNEMENT SUR LES ENZYMES
277
proton, en admettant que les constantes d’équilibre et les variations standards
d’énergie de GIBBS ont beaucoup plus de sens lorsqu’elles sont définies pour un
état standard à pH 7 (pour une discussion plus détaillée de ce point, voir ALBERTY
et CORNISH-BOWDEN, 1993.)
En appliquant cette idée à la dépendance au pH des paramètres de MICHAELIS et
MENTEN, nous rencontrons une différence importante entre le proton et les autres
inhibiteurs. Pour la plupart des inhibiteurs, il est parfaitement possible d’étudier la
réaction en absence de l’inhibiteur, et parfaitement raisonnable, donc, de définir les
paramètres réels comme ceux qui s’appliquent dans ce cas. Il n’est pas possible,
par contre, d’observer une réaction catalysée par un enzyme en absence de protons,
et le fait que les protons activent les enzymes aussi bien qu’ils ne les inhibent (alors
que les autres effecteurs de l’activité enzymatique inhibent plus souvent qu’ils
n’activent) signifie que nous ne pouvons même pas déterminer le comportement en
absence de proton par extrapolation. Finalement, en biochimie, toutes les distinctions entre constantes et variables sont plutôt des questions de pragmatisme que des
lois imposées par la nature et à l’exception de quelques constantes physiques
fondamentales, cette remarque s’applique pour la plupart des « constantes » en
science : même en chimie-physique, la température par exemple, ne fait pas partie
de la définition d’un état standard et donc les « constantes » d’équilibre varient
avec la température.
8.3.4. La dépendance au pH de K m
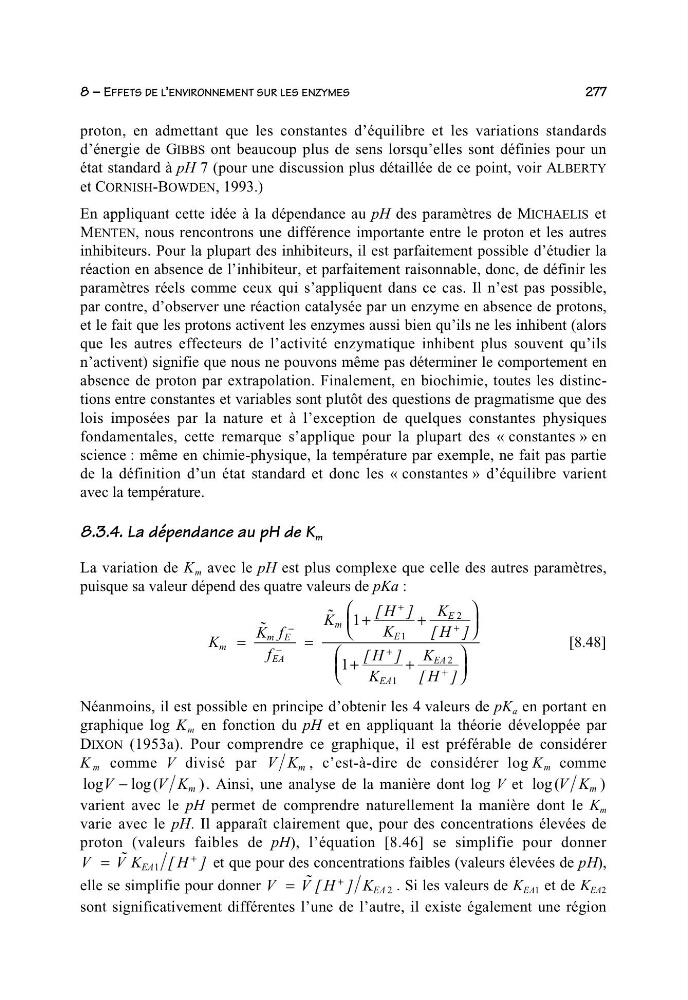
La variation de K m avec le pH est plus complexe que celle des autres paramètres,
puisque sa valeur dépend des quatre valeurs de pKa :
K
Kf
f
K
H
K
K
H
H
K
K
H
m
mE
EA
m
E
E
EA
EA
==
++
⎛
⎝
⎜
⎞
⎠
⎟
++
⎛
⎝
⎜
⎞
⎠
⎟
−
−
+
+
+
+
˜
˜
[]
[]
[]
[]
1
1
1
2
1
2
[8.48]
Néanmoins, il est possible en principe d’obtenir les 4 valeurs de pK a en portant en
graphique log K m en fonction du pH et en appliquant la théorie développée par
DIXON (1953a). Pour comprendre ce graphique, il est préférable de considérer
K m comme V divisé par VK m , c’est-à-dire de considérer log K m comme
log
log (
)
VV K m
−
. Ainsi, une analyse de la manière dont log V et log (
)
VK m
varient avec le pH permet de comprendre naturellement la manière dont le K m
varie avec le pH. Il apparaît clairement que, pour des concentrations élevées de
proton (valeurs faibles de pH), l’équation [8.46] se simplifie pour donner
VV K
H
EA
=
+
˜
[]
1
et que pour des concentrations faibles (valeurs élevées de pH),
elle se simplifie pour donner VV H
K EA
=
+
˜ []
2 . Si les valeurs de K EA1 et de K EA2
sont significativement différentes l’une de l’autre, il existe également une région