

244
CINÉTIQUE ENZYMATIQUE
les caractéristiques mécaniques, en dehors de la partie du mécanisme responsable
des deux échanges, affectent les deux vitesses de la même manière et, par conséquent, n'affectent pas leur rapport.
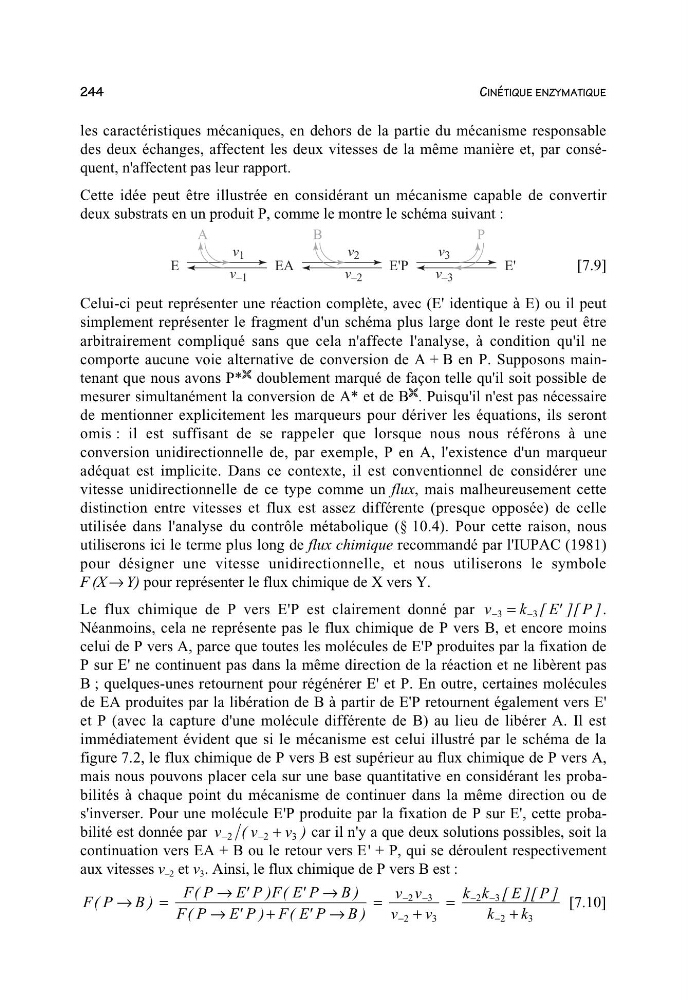
Cette idée peut être illustrée en considérant un mécanisme capable de convertir
deux substrats en un produit P, comme le montre le schéma suivant :
EA
A
E'P
v 1
v –1
E'
E
B
v 2
v –2
P
v 3
v –3
[7.9]
Celui-ci peut représenter une réaction complète, avec (E' identique à E) ou il peut
simplement représenter le fragment d'un schéma plus large dont le reste peut être
arbitrairement compliqué sans que cela n'affecte l'analyse, à condition qu'il ne
comporte aucune voie alternative de conversion de A + B en P. Supposons maintenant que nous avons P*
doublement marqué de façon telle qu'il soit possible de
mesurer simultanément la conversion de A* et de B
. Puisqu'il n'est pas nécessaire
de mentionner explicitement les marqueurs pour dériver les équations, ils seront
omis : il est suffisant de se rappeler que lorsque nous nous référons à une
conversion unidirectionnelle de, par exemple, P en A, l'existence d'un marqueur
adéquat est implicite. Dans ce contexte, il est conventionnel de considérer une
vitesse unidirectionnelle de ce type comme un flux, mais malheureusement cette
distinction entre vitesses et flux est assez différente (presque opposée) de celle
utilisée dans l'analyse du contrôle métabolique (§ 10.4). Pour cette raison, nous
utiliserons ici le terme plus long de flux chimique recommandé par l'IUPAC (1981)
pour désigner une vitesse unidirectionnelle, et nous utiliserons le symbole
F(X→ Y) pour représenter le flux chimique de X vers Y.
Le flux chimique de P vers E'P est clairement donné par vk EP
−− =
33 [ ' ][ ].
Néanmoins, cela ne représente pas le flux chimique de P vers B, et encore moins
celui de P vers A, parce que toutes les molécules de E'P produites par la fixation de
P sur E' ne continuent pas dans la même direction de la réaction et ne libèrent pas
B ; quelques-unes retournent pour régénérer E' et P. En outre, certaines molécules
de EA produites par la libération de B à partir de E'P retournent également vers E'
et P (avec la capture d'une molécule différente de B) au lieu de libérer A. Il est
immédiatement évident que si le mécanisme est celui illustré par le schéma de la
figure 7.2, le flux chimique de P vers B est supérieur au flux chimique de P vers A,
mais nous pouvons placer cela sur une base quantitative en considérant les probabilités à chaque point du mécanisme de continuer dans la même direction ou de
s'inverser. Pour une molécule E'P produite par la fixation de P sur E', cette probabilité est donnée par vvv −− +
22
3
() car il n'y a que deux solutions possibles, soit la
continuation vers EA + B ou le retour vers E' + P, qui se déroulent respectivement
aux vitesses v –2 et v 3 . Ainsi, le flux chimique de P vers B est :
FP B
FP EPFEP B
FP EP FEP B
vv
vv
kk E P
kk
()
(' ) ( '
)
(' )
( '
)
[] []
→=
→→
→+
→
=
+
=
+
−−
−
−−
−
23
23
23
23
[7.10]