

7 – UTILISATION D'ISOTOPES POUR L'ÉTUDE DES MÉCANISMES ENZYMATIQUES
241
7.3. ECHANGE D'ISOTOPES À L'ÉQUILIBRE
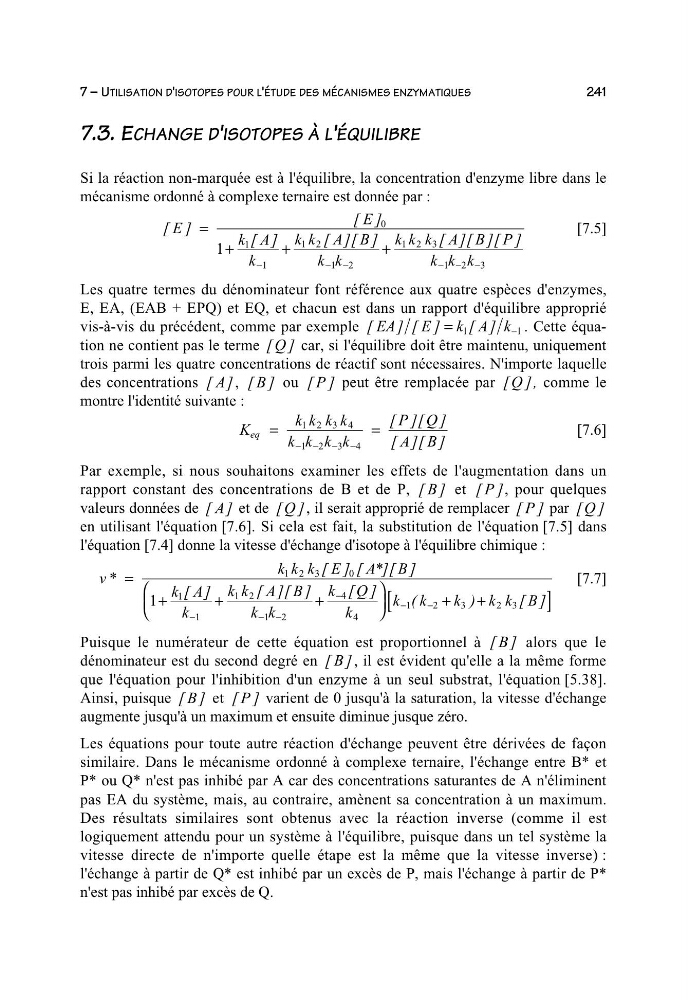
Si la réaction non-marquée est à l'équilibre, la concentration d'enzyme libre dans le
mécanisme ordonné à complexe ternaire est donnée par :
[]
[]
[]
[] []
[] [] []
E
E
kA
k
kk A B
kk
kk k A B P
kkk
=
++
+
−− −
− − −
0
1
1
12
12
123
12 3
1
[7.5]
Les quatre termes du dénominateur font référence aux quatre espèces d'enzymes,
E, EA, (EAB + EPQ) et EQ, et chacun est dans un rapport d'équilibre approprié
vis-à-vis du précédent, comme par exemple [] [ ]
[ ] –
EA
E
k A k
= 11 . Cette équation ne contient pas le terme [] Q car, si l'équilibre doit être maintenu, uniquement
trois parmi les quatre concentrations de réactif sont nécessaires. N'importe laquelle
des concentrations [] A , [] B ou [] P peut être remplacée par [] Q , comme le
montre l'identité suivante :
K
kk kk
kkkk
PQ
AB
eq ==
−− −−
1234
12 34
[] []
[] []
[7.6]
Par exemple, si nous souhaitons examiner les effets de l'augmentation dans un
rapport constant des concentrations de B et de P, [] B et [] P , pour quelques
valeurs données de [] A et de [] Q , il serait approprié de remplacer [] P par [] Q
en utilisant l'équation [7.6]. Si cela est fait, la substitution de l'équation [7.5] dans
l'équation [7.4] donne la vitesse d'échange d'isotope à l'équilibre chimique :
v
kk k E
A B
kA
k
kk A B
kk
kQ
k
kk
k
k kB
*
[ ] [ *][ ]
[]
[] []
[]
()
[ ]
=
++
+
⎛
⎝
⎜
⎞
⎠
⎟
++
[
]
−− −
−
−−
123
0
1
1
12
12
4
4
123
2 3
1
[7.7]
Puisque le numérateur de cette équation est proportionnel à [] B alors que le
dénominateur est du second degré en [] B , il est évident qu'elle a la même forme
que l'équation pour l'inhibition d'un enzyme à un seul substrat, l'équation [5.38].
Ainsi, puisque [] B et [] P varient de 0 jusqu'à la saturation, la vitesse d'échange
augmente jusqu'à un maximum et ensuite diminue jusque zéro.
Les équations pour toute autre réaction d'échange peuvent être dérivées de façon
similaire. Dans le mécanisme ordonné à complexe ternaire, l'échange entre B* et
P* ou Q* n'est pas inhibé par A car des concentrations saturantes de A n'éliminent
pas EA du système, mais, au contraire, amènent sa concentration à un maximum.
Des résultats similaires sont obtenus avec la réaction inverse (comme il est
logiquement attendu pour un système à l'équilibre, puisque dans un tel système la
vitesse directe de n'importe quelle étape est la même que la vitesse inverse) :
l'échange à partir de Q* est inhibé par un excès de P, mais l'échange à partir de P*
n'est pas inhibé par excès de Q.