

218
CINÉTIQUE ENZYMATIQUE
de l'enzyme libre ; dans le mécanisme séquentiel aléatoire, un des réactifs peut se
fixer à un mauvais complexe binaire ; dans le mécanisme séquentiel ordonné, le
second substrat ou le premier produit peut se fixer au mauvais complexe binaire.
Dans ce dernier cas, l'inhibition par le substrat peut avoir lieu soit dans la réaction
directe, soit dans la réaction inverse, mais pas dans les deux directions, puisque
seulement un des deux complexes binaires est disponible. Par souci pratique, nous
choisirons B comme le substrat responsable de l'inhibition dans chacun des
mécanismes, sachant que les résultats peuvent facilement être transposés à l'autre
situation si cela est nécessaire.
6.6.2. Mécanisme de type ordonné à complexe ternaire
Le complexe non-productif EBQ impliqué dans le mécanisme séquentiel ordonné a
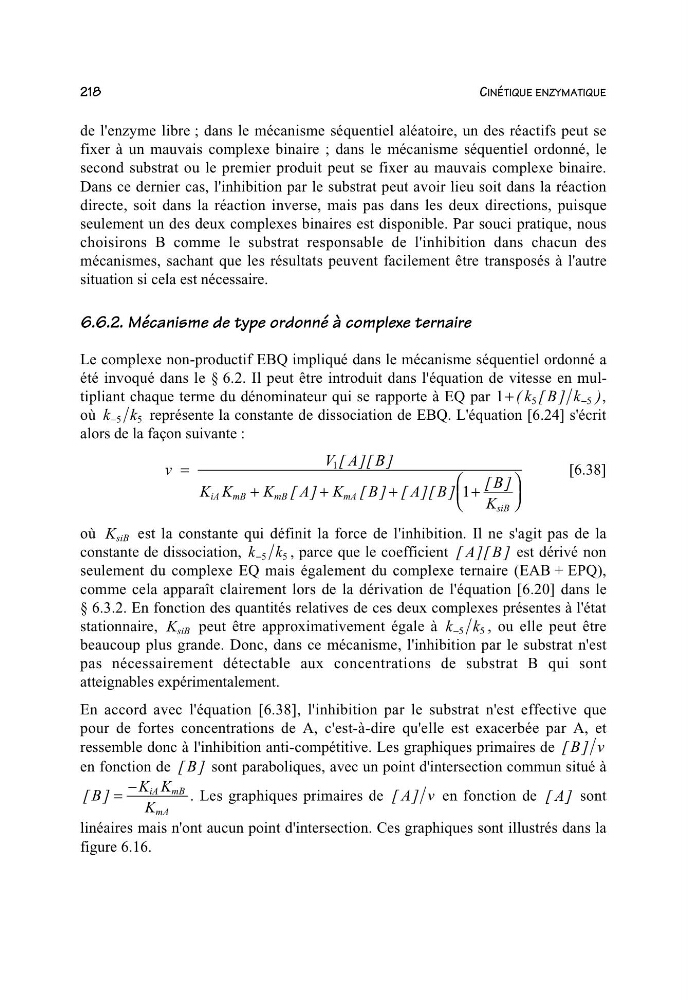
été invoqué dans le § 6.2. Il peut être introduit dans l'équation de vitesse en multipliant chaque terme du dénominateur qui se rapporte à EQ par 1
55
+
−
([]
)
kBk ,
où kk −55 représente la constante de dissociation de EBQ. L'équation [6.24] s'écrit
alors de la façon suivante :
v
VA B
KK
K
A K
B
A B
B
K
iA mB
mB
mA
siB
=
+++
+
⎛
⎝
⎜
⎞
⎠
⎟
1
1
[] []
[]
[][] []
[]
[6.38]
où K siB est la constante qui définit la force de l'inhibition. Il ne s'agit pas de la
constante de dissociation, kk −55 , parce que le coefficient [] []
ABest dérivé non
seulement du complexe EQ mais également du complexe ternaire (EAB + EPQ),
comme cela apparaît clairement lors de la dérivation de l'équation [6.20] dans le
§ 6.3.2. En fonction des quantités relatives de ces deux complexes présentes à l'état
stationnaire, K siB peut être approximativement égale à kk −55 , ou elle peut être
beaucoup plus grande. Donc, dans ce mécanisme, l'inhibition par le substrat n'est
pas nécessairement détectable aux concentrations de substrat B qui sont
atteignables expérimentalement.
En accord avec l'équation [6.38], l'inhibition par le substrat n'est effective que
pour de fortes concentrations de A, c'est-à-dire qu'elle est exacerbée par A, et
ressemble donc à l'inhibition anti-compétitive. Les graphiques primaires de [] Bv
en fonction de [] B sont paraboliques, avec un point d'intersection commun situé à
[] B
KK
K
iA mB
mA
=
−
. Les graphiques primaires de [] Av en fonction de [] A sont
linéaires mais n'ont aucun point d'intersection. Ces graphiques sont illustrés dans la
figure 6.16.