

174
CINÉTIQUE ENZYMATIQUE
largement supplanté cette approche chimique, mais il reste profitable de les
complémenter par une analyse cinétique des propriétés des mutants artificiels qui
sont produits. Avec des mutants de structure connue, il est possible de prédire
exactement comment le graphique de TSOU devrait être modifié par une mutation
particulière et la vérification expérimentale qu’il est modifié de cette manière est
une façon de confirmer l’exactitude de l’interprétation.
PROBLÈMES
5.1 - Les paramètres pour l’inactivation la plus rapide mesurée dans les
expériences de KITZ et WILSON (1962) étaient k 2 = 5 × 10
–3 s
–1 , K i = 0,1 mM,
pour le mécanisme présenté dans l’équation [5.1]. En supposant que K i
peut être exprimé comme () –
kkk 12
1
+
, quelle grandeur devrait avoir k 2
pour que cette expression soit suffisamment différente de la constante
d’équilibre () –
kk 11 supposé par KITZ et WILSON ? Quelle lumière est
apportée par le fait que les constantes de vitesse de second ordre pour la
fixation spécifique de petites molécules sur des protéines ont typiquement des valeurs de l’ordre de 10
–6 M
–1 s
–1 ou supérieures ?
5.2 - Les études initiales d’une estérase utilisant un mélange racémique du
substrat ont révélé que l’énantiomère L est le réel substrat, puisqu’il était
entièrement converti en produit alors que l’énantiomère D pouvait être
récupéré à la fin de la réaction. Sur la base de ce résultat, les cinétiques
de réactions ont été analysées en supposant que l’énantiomère D n’a
aucun effet sur l’enzyme, et une valeur de 2 mM a été estimée pour la
constante de MICHAELIS de l’énantiomère L. La suite du travail a établi
qu’il aurait été plus raisonnable de considérer l’énantiomère D comme
un inhibiteur compétitif avec K ic égal au K m pour l’énantiomère L.
Comment l’estimation originale de K m peut-elle être révisée pour tenir
compte de cette information ?
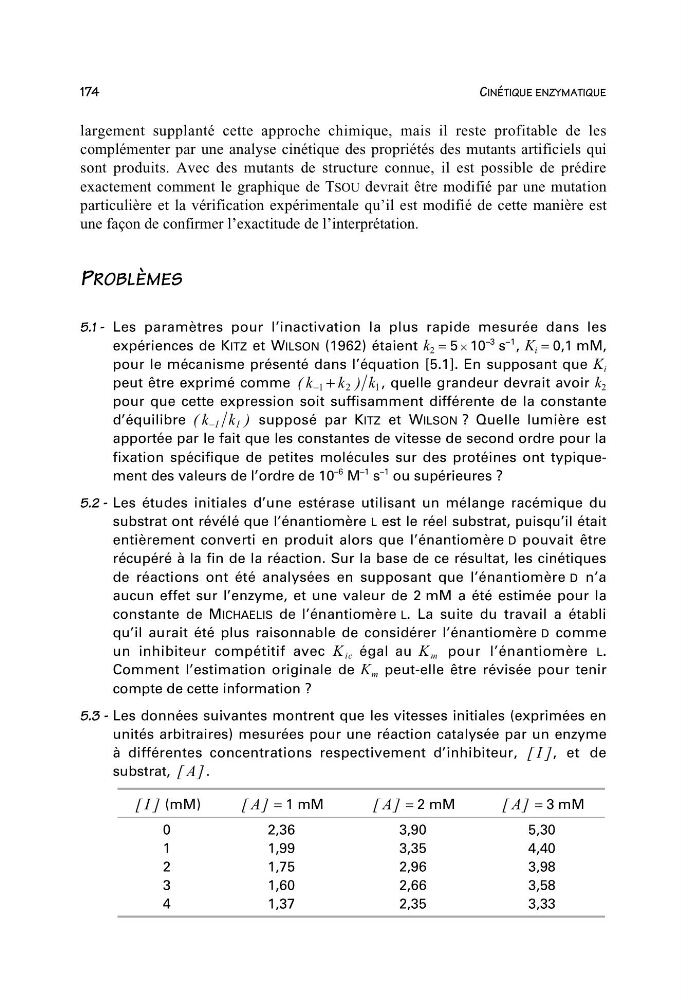
5.3 - Les données suivantes montrent que les vitesses initiales (exprimées en
unités arbitraires) mesurées pour une réaction catalysée par un enzyme
à différentes concentrations respectivement d’inhibiteur, [] I , et de
substrat, [] A .
[] I (mM)
[] A = 1 mM
[] A = 2 mM
[] A = 3 mM
0
1
2
3
4
2,36
1,99
1,75
1,60
1,37
3,90
3,35
2,96
2,66
2,35
5,30
4,40
3,98
3,58
3,33