

Chapitre V : Dynamique des populations
116
1991 ; Zorica et al., 2005 ; Tuset et al., 2005). Cependant, la valeur de L∞ donnée par Bouin
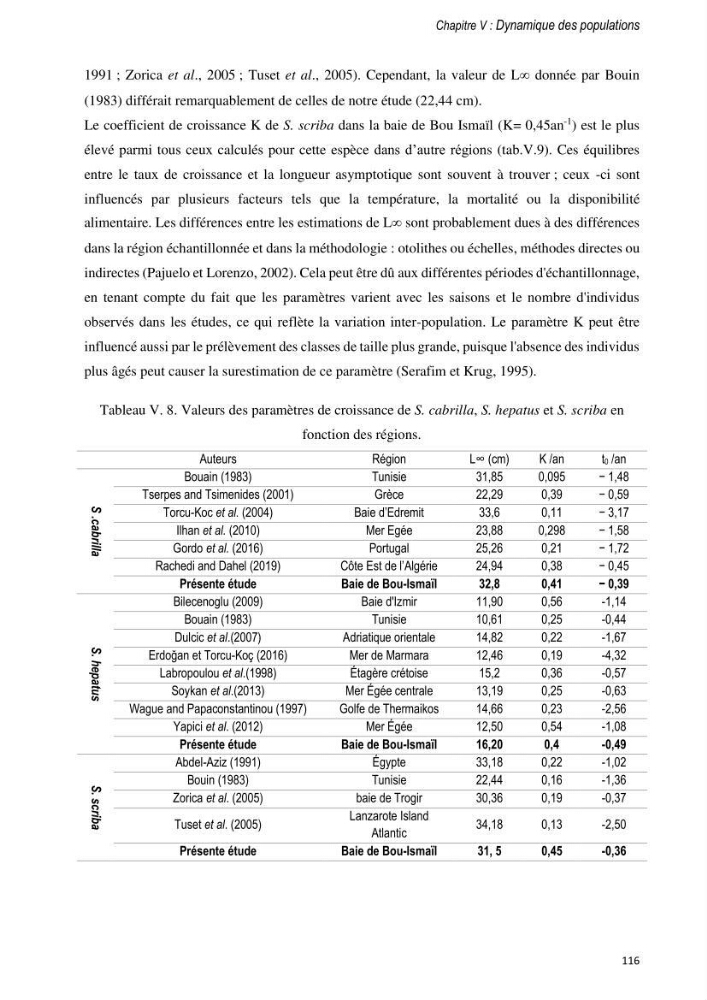
(1983) différait remarquablement de celles de notre étude (22,44 cm).
Le coefficient de croissance K de S. scriba dans la baie de Bou Ismaïl (K= 0,45an
-1 ) est le plus
élevé parmi tous ceux calculés pour cette espèce dans d’autre régions (tab.V.9). Ces équilibres
entre le taux de croissance et la longueur asymptotique sont souvent à trouver ; ceux -ci sont
influencés par plusieurs facteurs tels que la température, la mortalité ou la disponibilité
alimentaire. Les différences entre les estimations de L∞ sont probablement dues à des différences
dans la région échantillonnée et dans la méthodologie : otolithes ou échelles, méthodes directes ou
indirectes (Pajuelo et Lorenzo, 2002). Cela peut être dû aux différentes périodes d'échantillonnage,
en tenant compte du fait que les paramètres varient avec les saisons et le nombre d'individus
observés dans les études, ce qui reflète la variation inter-population. Le paramètre K peut être
influencé aussi par le prélèvement des classes de taille plus grande, puisque l'absence des individus
plus âgés peut causer la surestimation de ce paramètre (Serafim et Krug, 1995).
Tableau V. 8. Valeurs des paramètres de croissance de S. cabrilla, S. hepatus et S. scriba en
fonction des régions.
Auteurs
Région
L∞ (cm)
K /an
t0 /an
S
.cabrilla
Bouain (1983)
Tunisie
31,85
0,095
− 1,48
Tserpes and Tsimenides (2001)
Grèce
22,29
0,39
− 0,59
Torcu-Koc et al. (2004)
Baie d’Edremit
33,6
0,11
− 3,17
Ilhan et al. (2010)
Mer Egée
23,88
0,298
− 1,58
Gordo et al. (2016)
Portugal
25,26
0,21
− 1,72
Rachedi and Dahel (2019)
Côte Est de l’Algérie
24,94
0,38
− 0,45
Présente étude
Baie de Bou-Ismaïl
32,8
0,41
− 0,39
S.
hepatus
Bilecenoglu (2009)
Baie d'Izmir
11,90
0,56
-1,14
Bouain (1983)
Tunisie
10,61
0,25
-0,44
Dulcic et al.(2007)
Adriatique orientale
14,82
0,22
-1,67
Erdoğan et Torcu-Koç (2016)
Mer de Marmara
12,46
0,19
-4,32
Labropoulou et al.(1998)
Étagère crétoise
15,2
0,36
-0,57
Soykan et al.(2013)
Mer Égée centrale
13,19
0,25
-0,63
Wague and Papaconstantinou (1997)
Golfe de Thermaikos
14,66
0,23
-2,56
Yapici et al. (2012)
Mer Égée
12,50
0,54
-1,08
Présente étude
Baie de Bou-Ismaïl
16,20
0,4
-0,49
S.
scriba
Abdel-Aziz (1991)
Égypte
33,18
0,22
-1,02
Bouin (1983)
Tunisie
22,44
0,16
-1,36
Zorica et al. (2005)
baie de Trogir
30,36
0,19
-0,37
Tuset et al. (2005)
Lanzarote Island
Atlantic
34,18
0,13
-2,50
Présente étude
Baie de Bou-Ismaïl
31, 5
0,45
-0,36