

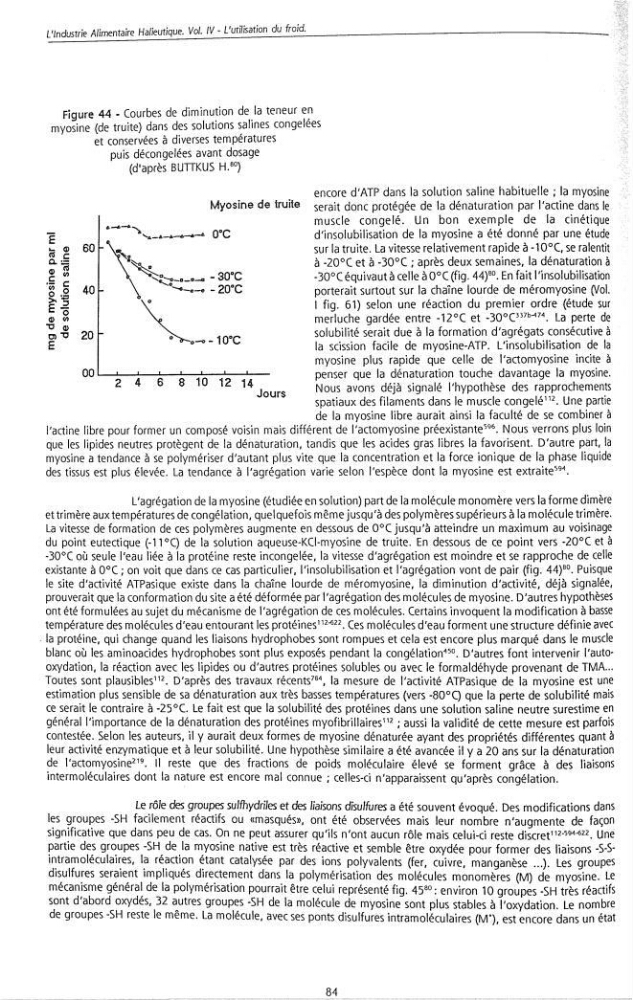
Figure 44 - Courbes de diminution de la teneur en
myosine (de truite) dans des solutions salines congelees
et conservées à diverses températures
puis décongelées avant dosage
(d'après BUTFKUS H.°)
_
encore d'ATP dans la solution saline habituelle ; la myosine
MY°SÎne de trurte
serait donc protégée de la dénaturation par l'actine dans le ‘
muscle congelé. Un bon exemple de la cinétique
Ê
\-A—…‘°
0°C
d'insolubilisation de la myosine a été donné par une étude
3 g
80
sur latruite. La vitesse relativement rapide à -10°C, se ralentit
g— '-ä
à -ZO°C et à -30°C ; après deux semaines, la dénaturation à
;._: Ë
\::;_._… - 30°C
—30°C équivaut à celle à 0°C (fig. 44)8°. En fait l’insolubilisation
3 ._g
40
\
\°—e—e — 20°C
porterait surtout sur la chaîne lourde de méromyosine (Vol.
È %
°
1 fig. 61) selon une réaction du premier ordre (étude sur
_g 3
merluche gardée entre
-1Z°C et
La perte
de
o: ‘n
20
,,
°__° _ 10°C
solubilité serait
due a la formation d’agregats consécutive
à
E
la scissron facrle de myosrne-ATP. L'msolubrlrsatron de la
myosine plus rapide que celle de l‘actomyosine incite à
ÛÛ
penser que la dénaturation touche davantage la myosine.
2488101214.
N
…,
.
Jours
ous avons deja srgnale lhypothese des rapprochements
spatiaux des filaments dans le muscle congelé“. Une partie
de la myosine libre aurait ainsi la faculté de se combinerà
l'actine libre pour former un composé voisin mais différent de l'actomyosine
Nous verrons plus loin
que les lipides neutres protègent de la dénaturation, tandis que les acides gras libres la favorisent. D‘autre part, la
myosine a tendance à se polymériser d’autant plus vite que la concentration et la force ionique de la phase liquide
des tissus est plus élevée. La tendance à l'agrégation varie selon l'espèce dont la myosine est extraite”‘*.
L'agrégation dela myosine (étudiée en solution) part de la molécule monomère vers la forme dimère
et trimère auxtempératures de congélation, quelquefois même jusqu'à des polymères supérieurs àla molécule trimère.
La vitesse de formation de ces polymères augmente en dessous de 0°C jusqu'à atteindre un maximum au voisinage
du point eutectique (-11°C) de la solution aqueuse-KCl-myosine de truite. En dessous de ce point vers -ZO°C et à
-30°C où seule l’eau liée à la protéine reste incongelée, la vitesse d'agrégation est moindre et se rapproche de celle
existante à 0°C ; on voit que dans ce cas particulier, l'insolubilisation et l'agrégation vont de pair (fig. 44)”. Puisque
le site d'activité ATPasique existe dans la chaîne lourde de méromyosine, la diminution d‘activité, déjà signalée,
prouverait que la conformation du site a été déformée par l'agrégation des molécules de myosine. D’autres hypothèses
ont été formulées au sujet du mécanisme de l'agrégation de ces molécules. Certains invoquent la modification à basse
température des molécules d’eau entourant les protéines“””. Ces molécules d'eau forment une structure définie avec
la protéine, qui change quand les liaisons hydrophobes sont rompues et cela est encore plus marqué dans le muscle
blanc où les aminoacides hydrophobes sont plus exposés pendant la
D'autres font intervenir l'auto—
oxydation, la réaction avec les lipides ou d'autres protéines solubles ou avec le formaldéhyde provenant de TMA...
Toutes sont plausiblesllz. D'après des travaux récents…, la mesure de l'activité ATPasique de la myosine est une
estimation plus sensible de sa dénaturation aux très basses températures (vers -80°C) que la perte de solubilité mais
ce serait le contraire à -25°C. Le fait est que la solubilité des protéines dans une solution saline neutre surestime en
général l'importance de la dénaturation des protéines myofibrillaires‘12 ; aussi la validité de cette mesure est parfois
contestée. Selon les auteurs, il y aurait deux formes de myosine dénaturée ayant des propriétés différentes quantà
leur activité enzymatique et à leur solubilité. Une hypothèse similaire a été avancée il y a 20 ans sur la dénaturation
de l'actomyosine“°. Il reste que des fractions de poids moléculaire élevé se forment grâce à des liaisons
intermoléculaires dont la nature est encore mal connue ; celles—ci n'apparaissent qu'après congélation.
Le rôle des groupes sulfhydriles et des liaisons disulfures a été souvent évoqué. Des modifications dans
les groupes —SH facilement réactifs ou «masqués», ont été observées mais leur nombre n'augmente de façon
significative que dans peu de cas. On ne peut assurer qu'ils n'ont aucun rôle mais celui—ci reste discret“2‘sgmî. Une
partie
des groupes —SH de la myosine native est très réactive et semble être oxydée pour former des liaisons -S-S—
mtramoléculaires, la réaction
étant catalysée par des ions polyvalents (fer, cuivre, manganèse ...). Les groupes
dusulfures seraient impliqués directement dans la polymérisation des molécules monomères (Nl) de myosine.
Le
mecanisme general
de la polymérisation pourrait être celui représenté fig. 4580: environ 10 groupes -SH très réactifs
äîntrîîbgdsâxyäâ,lî2mautresLgroup‘es -‘SH
de la molécule de myosine
sont plus stables
à l'oxydation. Le nombre
9
p
eme.
a mo ecu e, avec ses ponts disulfures mtramolecularres (M”), est encore dans un etat
……
.,
…
84
,……