

624 cinquième partie La diversité biologique à travers l’évolution
versa). Prenez, par exemple, les espèces d’Argyroxiphium d’Hawaï
que nous avons vues au chapitre 25. Ces végétaux ont des
morphologies très différentes d’une île à l’autre de l’archipel :
certains sont des arbres hauts et clairsemés, tandis que d’autres
se présentent sous forme de buissons bas et denses (voir la
figure 25.20, p. 606). Mais, en dépit de ces différences phénotypiques frappantes, les gènes de ces plantes sont très semblables. En se basant sur ces divergences moléculaires minimes,
on estime que le groupe des Argyroxiphium a commencé à
diverger il y a 5 millions d’années, soit au moment où apparut
la plus vieille île de l’archipel. Nous verrons plus loin dans ce
chapitre comment les scientifiques utilisent les données moléculaires pour estimer ces divergences temporelles.
Distinguer homologie et analogie
La construction d’une phylogenèse se heurte à une difficulté
particulière : il ne faut pas confondre les ressemblances attribuables à la convergence, appelées analogies, avec celles qui
sont imputables à des ancêtres communs (homologies). Seules
les homologies sont utiles pour nous aider à construire des
arbres phylogénétiques. Comme nous l’avons vu au chapitre 22, l’évolution est dite convergente quand les facteurs
environnementaux et la sélection naturelle produisent des
adaptations semblables (analogues) chez des organismes de
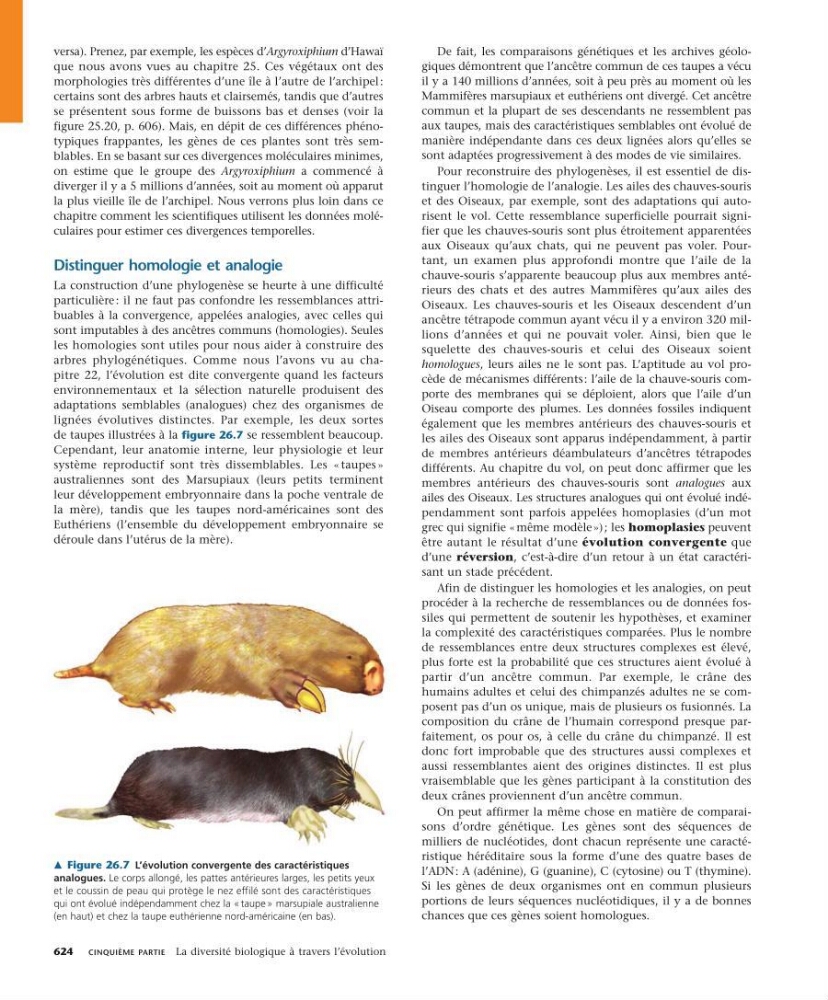
lignées évolutives distinctes. Par exemple, les deux sortes
de taupes illustrées à la figure 26.7 se ressemblent beaucoup.
Cependant, leur anatomie interne, leur physiologie et leur
système reproductif sont très dissemblables. Les « taupes »
australiennes sont des Marsupiaux (leurs petits terminent
leur développement embryonnaire dans la poche ventrale de
la mère), tandis que les taupes nord-américaines sont des
Euthériens (l’ensemble du développement embryonnaire se
déroule dans l’utérus de la mère).
De fait, les comparaisons génétiques et les archives géologiques démontrent que l’ancêtre commun de ces taupes a vécu
il y a 140 millions d’années, soit à peu près au moment où les
Mammifères marsupiaux et euthériens ont divergé. Cet ancêtre
commun et la plupart de ses descendants ne res semblent pas
aux taupes, mais des caractéristiques semblables ont évolué de
manière indépendante dans ces deux lignées alors qu’elles se
sont adaptées progressivement à des modes de vie similaires.
Pour reconstruire des phylogenèses, il est essentiel de distinguer l’homologie de l’analogie. Les ailes des chauves-souris
et des Oiseaux, par exemple, sont des adaptations qui autorisent le vol. Cette ressemblance superficielle pourrait signifier que les chauves-souris sont plus étroitement apparentées
aux Oiseaux qu’aux chats, qui ne peuvent pas voler. Pourtant, un examen plus approfondi montre que l’aile de la
chauve-souris s’apparente beaucoup plus aux membres antérieurs des chats et des autres Mammifères qu’aux ailes des
Oiseaux. Les chauves-souris et les Oiseaux descendent d’un
ancêtre tétrapode commun ayant vécu il y a environ 320 millions d’années et qui ne pouvait voler. Ainsi, bien que le
squelette des chauves-souris et celui des Oiseaux soient
homologues, leurs ailes ne le sont pas. L’aptitude au vol procède de mécanismes différents : l’aile de la chauve-souris comporte des membranes qui se déploient, alors que l’aile d’un
Oiseau comporte des plumes. Les données fossiles indiquent
également que les membres antérieurs des chauves-souris et
les ailes des Oiseaux sont apparus indépen damment, à partir
de membres antérieurs déambulateurs d’ancêtres tétrapodes
différents. Au chapitre du vol, on peut donc affirmer que les
membres antérieurs des chauves-souris sont analogues aux
ailes des Oiseaux. Les structures analogues qui ont évolué indépendamment sont parfois appelées homoplasies (d’un mot
grec qui signifie « même modèle ») ; les homoplasies peuvent
être autant le résultat d’une évolution convergente que
d’une réversion, c’est-à-dire d’un retour à un état caractérisant un stade précédent.
Afin de distinguer les homologies et les analogies, on peut
procéder à la recherche de ressemblances ou de données fossiles qui permettent de soutenir les hypothèses, et examiner
la complexité des caractéristiques comparées. Plus le nombre
de ressemblances entre deux structures complexes est élevé,
plus forte est la probabilité que ces structures aient évolué à
partir d’un ancêtre commun. Par exemple, le crâne des
humains adultes et celui des chimpanzés adultes ne se composent pas d’un os unique, mais de plusieurs os fusionnés. La
composition du crâne de l’humain correspond presque parfaitement, os pour os, à celle du crâne du chimpanzé. Il est
donc fort improbable que des structures aussi complexes et
aussi ressemblantes aient des origines distinctes. Il est plus
vraisemblable que les gènes participant à la constitution des
deux crânes proviennent d’un ancêtre commun.
On peut affirmer la même chose en matière de comparaisons d’ordre génétique. Les gènes sont des séquences de
milliers de nucléotides, dont chacun représente une caractéristique héréditaire sous la forme d’une des quatre bases de
l’ADN : A (adénine), G (guanine), C (cytosine) ou T (thymine).
Si les gènes de deux organismes ont en commun plusieurs
portions de leurs séquences nucléotidiques, il y a de bonnes
chances que ces gènes soient homologues.
m Figure 26.7 L’évolution convergente des caractéristiques
analogues. Le corps allongé, les pattes antérieures larges, les petits yeux
et le coussin de peau qui protège le nez effilé sont des caractéristiques
qui ont évolué indépendamment chez la « taupe » marsupiale australienne
(en haut) et chez la taupe euthérienne nord-américaine (en bas).