

570 quatrième partie Les mécanismes de l’évolution
ConCept
24.2
La spéciation peut avoir lieu
en présence ou en l’absence
d’isolement géographique
Maintenant que nous avons clarifié la notion d’espèce, revenons à notre exposé sur le processus par lequel une nouvelle
espèce se forme à partir d’espèces existantes. Les deux grands
modes de spéciation – la spéciation allopatrique et la spéciation sympatrique – diffèrent par la manière dont le flux génétique est interrompu entre deux ou plusieurs populations
(figure 24.5).
La spéciation allopatrique (« autre patrie »)
Dans la spéciationallopatrique (du grec allos, « autre », et
du latin patria, « patrie »), le flux génétique est réduit ou interrompu lorsqu’une population se divise en sous-populations
isolées géographiquement. Ainsi, la baisse du niveau d’eau
d’un lac peut engendrer l’apparition de plusieurs petits lacs
qui abriteront des populations séparées (voir la figure 24.5).
De même, un fleuve peut changer de lit et diviser une population animale incapable de passer d’une rive à l’autre. La
spéciation allopatrique peut aussi se produire sans remodelage géologique. C’est ce qui arrive, par exemple, lorsque des
individus colonisent une région éloignée et que leurs descendants s’isolent géographiquement de la population mère.
C’est probablement la spéciation allopatrique qui explique
l’existence du cormoran aptère de la figure 24.1 : ses lointains
ancêtres volants du continent ont colonisé les Galápagos et
leurs descendants ont évolué différemment d’eux.
Le processus de la spéciation allopatrique
Quelle ampleur doit avoir une barrière géographique pour
favoriser une spéciation allopatrique ? Tout dépend de la capacité de déplacement des organismes. Les oiseaux, les couguars
(Felis concolor) et les coyotes (Canis latrans) peuvent franchir
des collines, des fleuves et des canyons, et ces barrières n’empêchent nullement le transit de pollen ou de graines de plantes
à fleurs transportés par le vent. En revanche, pour de petits
rongeurs, un canyon profond ou un vaste fleuve devient une
barrière infranchissable (figure 24.6).
Une fois produite la séparation géographique, les patrimoines génétiques peuvent diverger. Diverses mutations apparaissent, et la sélection naturelle comme la dérive génétique
peuvent modifier les fréquences alléliques de diverses manières.
L’isolement reproductif peut résulter de la sélection ou d’une
dérive génétique qui a amené les populations à diverger génétiquement. Par exemple, sur l’île d’Andros dans les Bahamas,
des populations du poisson-moustique (Gambusia hubbsi) ont
colonisé une série d’étangs qui ont ensuite été isolés les uns
des autres. Les analyses génétiques indiquent qu’il y a peu ou
pas de flux génétique entre les étangs. L’environnement y est
très similaire, à ceci près que certains hébergent de nombreux
prédateurs du G. hubbsi et d’autres pas. Dans les étangs à
forte pression de prédation, la sélection a favorisé chez ces
poissons-moustiques une configuration corporelle qui leur
permet de brèves pointes de vitesse (figure 24.7), alors que
dans les étangs sans pression de prédation elle a favorisé une
configuration corporelle qui améliore la capacité de nager
durant de longues périodes. Comment ces pressions sélectives
différentes ont-elles influé sur l’évolution des barrières reproductives ? Pour répondre à cette question, des chercheurs ont
réuni des poissons-moustiques des deux types d’étangs. Ils
m Figure 24.5 Les deux principaux modes de spéciation.
(a) Spéciation allopatrique :
une population forme une
nouvelle espèce à la suite
d’un isolement géographique
qui l’a séparée de la
population mère.
(b) Spéciation sympatrique :
une petite population forme
une nouvelle espèce, bien
qu’elle ne soit pas isolée
géographiquement.
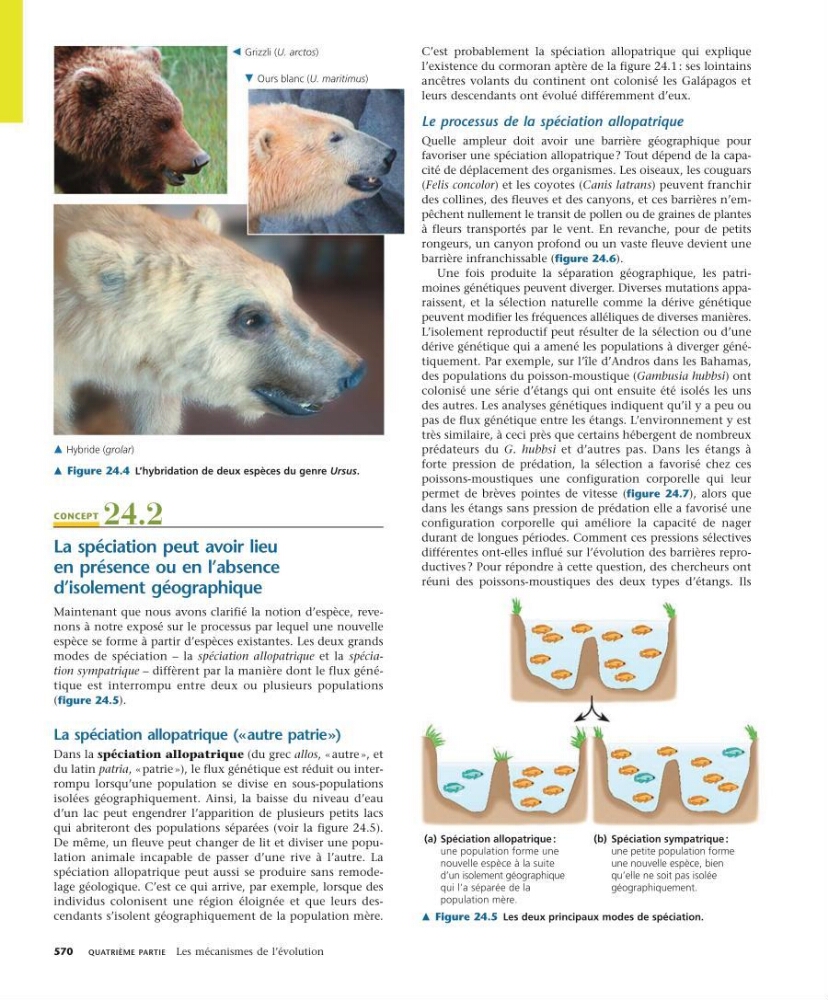
m Figure 24.4 L’hybridation de deux espèces du genre Ursus.
᭢ Ours blanc (U. maritimus)
᭣ Grizzli (U. arctos)
᭡ Hybride (grolar)