

chapitre 24 L’origine des espèces
569
Isolement
gamétique
Les spermatozoïdes d’une espèce
donnée sont généralement incapables de féconder les ovules d’une
autre espèce. Divers mécanismes
sont à l’origine de cet échec.
Par exemple, les spermatozoïdes
peuvent être incapables de sur vivre
dans le système génital féminin
d’une autre espèce, ou des mécanismes biochimiques peuvent les
empêcher de perforer la membrane
entourant l’ovule de l’autre espèce.
Les barrières postzygotiques empêchent un zygote hybride
de devenir un adulte viable et fécond.
DESCENDANT
VIABLE ET
FÉCOND
FÉCONDATION
(g)
(h)
(i)
(j)
(k)
(l)
Viabilité réduite
des hybrides
Les gènes d’espèces parentales
différentes peuvent interagir
et empêcher le développement
de l’hybride ou sa survie dans
son environnement.
Fécondité réduite
des hybrides
Même s’ils sont vigoureux,
les hybrides peuvent être stériles.
Il arrive que deux espèces se croisent
et engendrent des descendants
hybrides robustes. Chez l’hybride,
si les deux espèces parentales n’ont
pas le même nombre de chromosomes ou si leurs chromosomes
n’ont pas la même structure,
la méiose ne produit pas de gamètes
normaux. Comme les hybrides stériles sont incapables de produire des
descendants lorsqu’ils s’accouplent
avec l’une ou l’autre de leurs lignées
parentales, la libre circulation
des gènes des deux espèces
est impossible.
Déchéance
des hybrides
Certains hybrides de la première
génération sont viables et féconds.
Toutefois, lorsqu’ils s’accouplent
entre eux ou avec l’une des
espèces parentales, leur progéniture est frêle ou stérile.
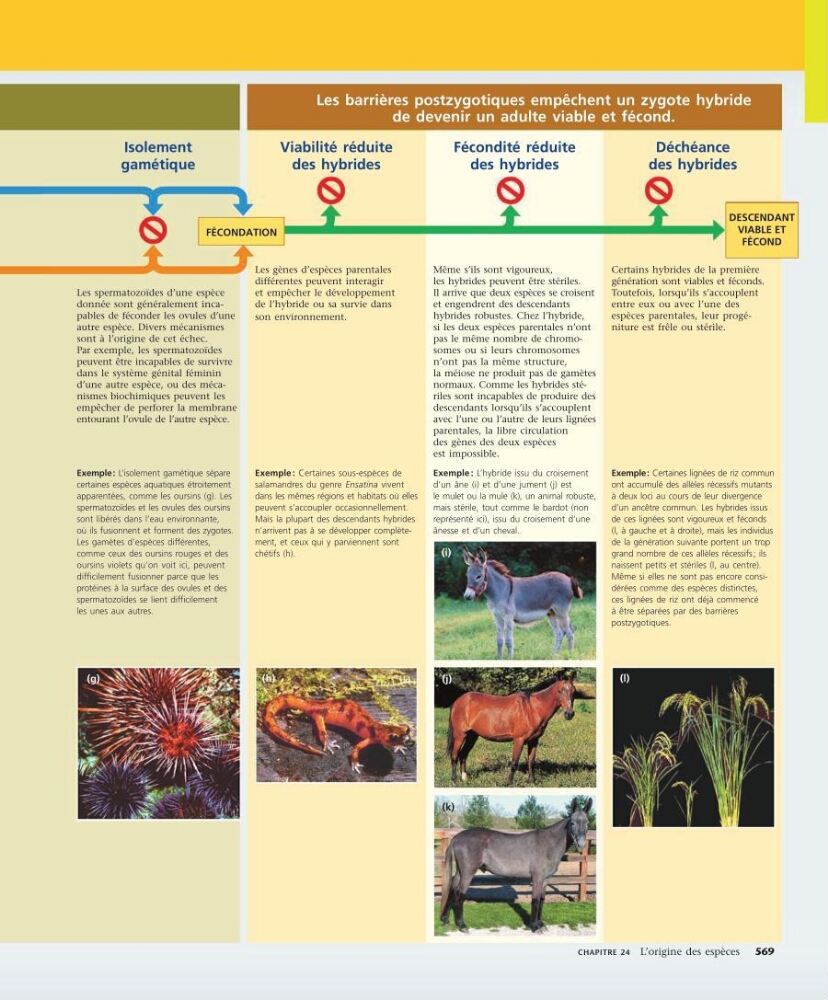
Exemple : L’isolement gamétique sépare
certaines espèces aquatiques étroitement
apparentées, comme les oursins (g). Les
spermatozoïdes et les ovules des oursins
sont libérés dans l’eau environnante,
où ils fusionnent et forment des zygotes.
Les gamètes d’espèces différentes,
comme ceux des oursins rouges et des
oursins violets qu’on voit ici, peuvent
difficilement fusionner parce que les
protéines à la surface des ovules et des
spermatozoïdes se lient difficilement
les unes aux autres.
Exemple : Certaines sous-espèces de
salamandres du genre Ensatina vivent
dans les mêmes régions et habitats où elles
peuvent s’accoupler occasionnellement.
Mais la plupart des descendants hybrides
n’arrivent pas à se développer complètement, et ceux qui y parviennent sont
chétifs (h).
Exemple : L’hybride issu du croisement
d’un âne (i) et d’une jument (j) est
le mulet ou la mule (k), un animal robuste,
mais stérile, tout comme le bardot (non
représenté ici), issu du croisement d’une
ânesse et d’un cheval.
Exemple : Certaines lignées de riz commun
ont accumulé des allèles récessifs mutants
à deux loci au cours de leur divergence
d’un ancêtre commun. Les hybrides issus
de ces lignées sont vigoureux et féconds
(l, à gauche et à droite), mais les individus
de la génération suivante portent un trop
grand nombre de ces allèles récessifs ; ils
naissent petits et stériles (l, au centre).
Même si elles ne sont pas encore considérées comme des espèces distinctes,
ces lignées de riz ont déjà commencé
à être séparées par des barrières
postzygotiques.