

548 quatrième partie Les mécanismes de l’évolution
On peut caractériser la composition génétique d’une population en décrivant son patrimoine génétique (aussi appelé
pool génétique ou fonds génétique). Ce patrimoine génétique est
constitué de tous les exemplaires de chaque type d’allèles de
chaque locus de chacun des membres de la population. Si un
seul allèle existe pour un locus donné dans une population,
on dit de cet allèle qu’il est fixé dans le patrimoine génétique,
et tous les individus sont homozygotes pour cet allèle. Toutefois, s’il existe dans une population deux allèles ou davantage
pour un locus donné, les membres de cette population peuvent
être soit homozygotes, soit hétérozygotes pour cet allèle.
Dans une population, chaque allèle a une
fréquence (une proportion). Par exemple, imaginons une population de 500 plantes à fleurs
sauvages ayant deux allèles, C
R
et C
B
, pour un
locus qui code pour le pigment des fleurs. Ces
allèles affichent une dominance incomplète
(voir la figure 14.10, p. 310) ; chaque génotype
a donc son phénotype propre. Les plantes homozy gotes pour l’allèle C
R
(C
R
C
R
) produisent un
pigment rouge et ont des pétales rouges ; les
plantes homozygotes pour l’allèle C
B
(C
B
C
B
) ne
produisent aucun pigment rouge et leurs pétales sont blancs.
Quant aux plantes hétérozygotes (C
R
C
B
), elles produisent un
peu de pigment rouge et ont des pétales roses.
Supposons que notre population renferme 320 plantes
à pétales rouges, 160 à pétales roses et 20 à pétales blancs.
Ces allèles présentent une dominance incomplète (voir le
chapitre 14). Comme ce sont des organismes diploïdes, cette
population de 500 individus renferme un total de 1 000 allèles
(2 3 500) déterminant la couleur des pétales. L’allèle dominant
C
R
représente à lui seul 800 gènes (soit 320 3 2 5 640 gènes
relatifs aux plantes C
R
C
R
, plus 160 3 1 5 160 gènes relatifs
aux plantes C
R
C
B
).
Dans le cas d’un locus pour lequel il n’y a que deux allèles
dans une population, les généticiens des populations représentent la fréquence d’un des allèles par la lettre p, et celle
de l’autre par la lettre q. Par conséquent, p, la fréquence de
l’allèle C
R
dans le patrimoine génétique de la population,
s’élève à 800 4 1 000 5 0,8 5 80 %. Comme il n’existe que
deux formes alléliques du gène de la couleur des pétales,
nous savons que la fréquence de l’allèle C
B
, représentée par q,
doit être de 0,2, c’est-à-dire de 20 %. Aux loci qui ont plus de
deux allèles, la somme de toutes les fréquences doit aussi
égaler 1 (100 %). Nous allons maintenant voir comment la
fréquence des allèles et des génotypes permet de vérifier s’il y
a une évolution en cours dans une population.
La loi de hardy-Weinberg
Une façon de vérifier si la sélection naturelle ou d’autres
facteurs causent une évolution à un locus particulier consiste
à déterminer ce que serait la composition génétique d’une
population s’il n’y avait pas d’évolution à ce locus. On peut
alors comparer ce scénario avec les données d’une population réelle. S’il n’y a pas de différences, on peut en conclure
que la population réelle n’est pas en train d’évoluer. S’il y a
des différences, cela signifie que la population réelle pourrait
être en train d’évoluer – et on peut alors essayer de découvrir
pourquoi.
L’équilibre de Hardy-Weinberg
La loi de Hardy-Weinberg – du nom du mathématicien
anglais Godfrey Harold Hardy (1877-1947) et du médecin
allemand Wilhelm Weinberg (1862-1937) qui l’ont énoncée
chacun de leur côté en 1908 – permet de décrire le patrimoine
génétique d’une population qui n’est pas en évolution. Cette
loi veut que les fréquences alléliques et génotypiques d’une
population restent constantes de génération en génération, à
condition que seules la ségrégation mendélienne et la recombinaison d’allèles soient à l’œuvre. Un tel équilibre génétique
s’appelle un équilibre de Hardy-Weinberg.
Lorsqu’on utilise la loi de Hardy-Weinberg, il est utile d’envisager les croisements génétiques d’une nouvelle façon. Nous
avons déjà utilisé des grilles de Punnett pour déterminer les
génotypes des descendants d’un croisement génétique (voir
la figure 14.5, p. 304). Ici, au lieu de considérer les combinaisons alléliques qui peuvent résulter d’un seul croisement,
pensez plutôt à la combinaison des allèles dans tous les croisements qui ont lieu dans une population.
Imaginez qu’on mette tous les allèles d’un certain locus de
tous les membres d’une population dans un gros bac représentant le patrimoine génétique de cette population pour ce
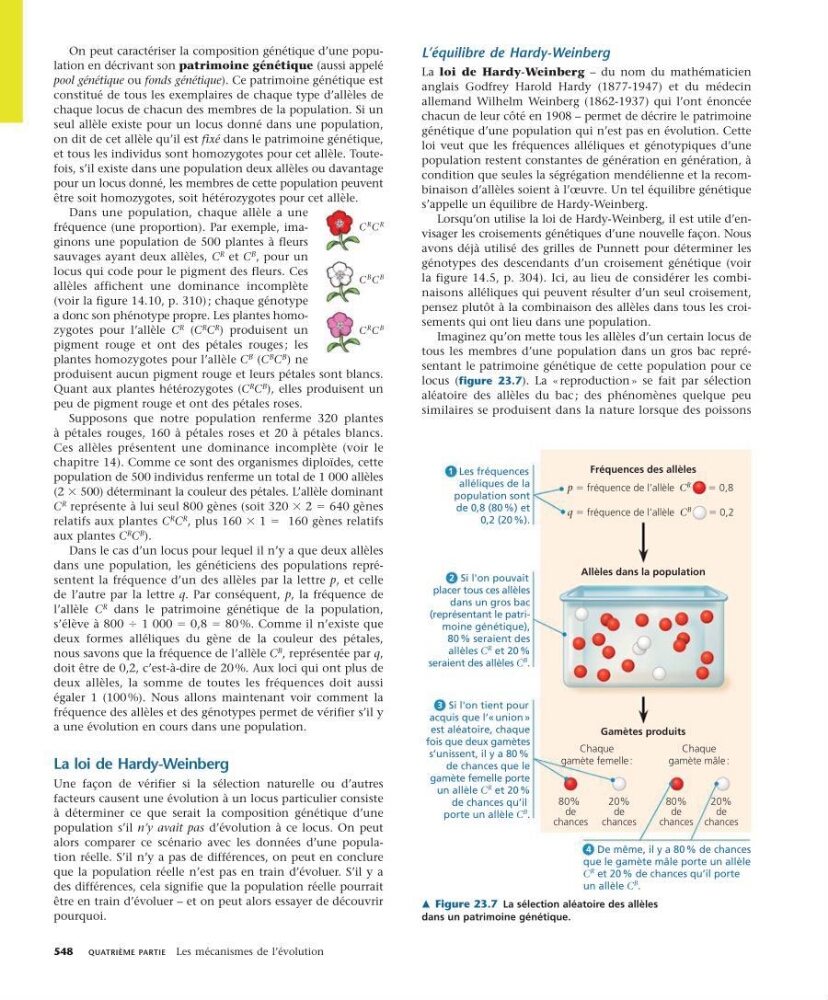
locus (figure 23.7). La « reproduction » se fait par sélection
aléatoire des allèles du bac ; des phénomènes quelque peu
similaires se produisent dans la nature lorsque des poissons
C
R C
R
C
B C
B
C
R C
B
m Figure 23.7 La sélection aléatoire des allèles
dans un patrimoine génétique.
3
Les fréquences
alléliques de la
population sont
de 0,8 (80 %) et
0,2 (20 %).
1
Si l'on pouvait
placer tous ces allèles
dans un gros bac
(représentant le patrimoine génétique),
80 % seraient des
allèles C
R et 20 %
seraient des allèles C
B
.
2
Si l'on tient pour
acquis que l’« union »
est aléatoire, chaque
fois que deux gamètes
s’unissent, il y a 80 %
de chances que le
gamète femelle porte
un allèle C
R et 20 %
de chances qu’il
porte un allèle C
B
.
Fréquences des allèles
Allèles dans la population
Gamètes produits
Chaque
gamète femelle :
Chaque
gamète mâle :
80%
de
chances
20%
de
chances
80%
de
chances
20%
de
chances
p ϭ fréquence de l’allèle C
R
ϭ 0,8
q ϭ fréquence de l’allèle C
B
ϭ 0,2
De même, il y a 80 % de chances
que le gamète mâle porte un allèle
C
R et 20 % de chances qu’il porte
un allèle C
B
.
4