

546 quatrième partie Les mécanismes de l’évolution
d’autres processus produisent de nouveaux allèles et de nouveaux gènes. Plusieurs de ces diversités génétiques peuvent
apparaître en peu de temps chez des organismes qui se reproduisent rapidement. La reproduction sexuée peut également
donner lieu à la diversité génétique lorsque les gènes existants se recombinent.
La formation de nouveaux allèles
Comme nous l’avons expliqué aux chapitres 17 et 21, de nouveaux allèles peuvent résulter d’une mutation, c’est-à-dire d’un
changement dans la séquence de nucléotides de l’ADN d’un
organisme. Une mutation est un coup de dés : on ne peut pas
savoir exactement quels segments d’ADN elle modifiera, ni
quels seront ses effets. Comme la plupart des mutations se
produisent dans des cellules somatiques, elles disparaissent à
la mort de l’individu. Chez les organismes multicellulaires,
seules les mutations de lignées cellulaires produisant les
gamètes transmissibles peuvent se transmettre aux descendants. Pour les Végétaux et les Champignons, ce phénomène
n’est pas aussi contraignant qu’il peut le sembler puisque de
nombreuses lignées cellulaires peuvent produire des gamètes
(voir les figures 30.6, p. 724, et 31.17, p. 749).
Aussi minime soit-elle, la modification d’une seule base
d’un gène (mutation ponctuelle) peut exercer un effet considérable sur le phénotype. C’est le cas par exemple de la mutation responsable de la drépanocytose ou anémie à hématies
falciformes (voir la figure 17.23, p. 398). Les organismes sont
le produit de milliers de générations soumises à la sélection ;
il est donc improbable qu’une seule mutation améliore un
génome. En fait, la majeure partie de ces mutations sont légèrement dommageables. Mais la plupart des mutations ponctuelles sont relativement sans effet, en partie parce que le plus
gros de l’ADN du génome eucaryote ne code pour aucune
protéine. De plus, en raison de la redondance du code génétique, même les mutations ponctuelles dans les gènes codant
pour une protéine n’ont pas d’incidence sur la fonction de la
molécule si la structure primaire n’a subi aucun changement.
Et même si cette composition change, il se peut que ni la forme
ni la fonction de la protéine s’en trouvent modifiées. Cependant, comme nous le verrons plus loin dans ce chapitre, il
arrive qu’un allèle mutant améliore l’adaptation d’un individu à son milieu et favorise son succès reproductif.
Les mutations modifiant le nombre
ou la séquence des gènes
Les mutations chromosomiques qui éliminent, perturbent
ou réarrangent d’un seul coup un grand nombre de loci
sont presque toujours dommageables. Toutefois, lorsque ces
mutations à grande échelle laissent les gènes intacts, leurs
effets peuvent être relativement neutres (comme dans le
cas des souris de Madère à la figure 23.4). Dans de rares cas, il
arrive même que le réarrangement chromosomique soit bénéfique. Par exemple, la translocation d’un segment chromosomique vers un chromosome différent peut réunir des gènes
qui donnent un avantage à l’organisme lorsqu’ils sont transmis ensemble.
La duplication de gènes causée par des erreurs au cours de
la méiose (comme un enjambement inégal), un glissement
durant la réplication de l’ADN ou les activités d’éléments
transposables (voir les chapitres 15 et 21) sont d’importants
facteurs de variation. Comme d’autres aberrations chromosomiques, les duplications de grands segments chromosomiques
sont presque toujours nuisibles, alors que les duplications de
plus petits segments d’ADN ne le sont pas nécessairement.
Les duplications génétiques qui n’ont pas de répercussions
graves peuvent persister de génération en génération, faisant
en sorte que les mutations s’accumulent au fil du temps. Il en
résulte alors un génome plus grand, dont les nouveaux gènes
peuvent exercer de nouvelles fonctions.
Ces augmentations bénéfiques du nombre de gènes
semblent avoir joué un rôle important dans l’évolution. Par
exemple, les ancêtres éloignés des Mammifères portaient un
seul gène olfactif qui s’est dupliqué à maintes reprises, de sorte
que les humains d’aujourd’hui possèdent près de 1 000 gènes
de récepteurs olfactifs, et les souris, 1 300. Cette prolifération
spectaculaire des gènes olfactifs a probablement aidé les premiers mammifères à déceler des odeurs même légères et à
les différencier. Plus récemment, environ 60 % de ces gènes
chez les humains ont été inactivés par des mutations, alors
que cette proportion ne dépasse pas 20 % chez les souris.
Comme les taux de mutations sont similaires chez les humains
et les souris, cette différence est probablement due aux effets
d’une puissante sélection naturelle, ce qui montre bien qu’un
odorat polyvalent est plus important pour les souris que pour
les humains.
Les taux de mutation
Les taux de mutation tendent à être assez faibles chez les
Animaux et les Végétaux, avec environ 1 mutation par
100 000 gènes pour chaque génération, et souvent moins chez
les Procaryotes. Mais chez les Procaryotes, le temps de génération (période moyenne entre la naissance d’un individu et
celle de ses rejetons) est généralement tellement court que les
mutations produisent des variations génétiques très rapidement. Il en est de même des virus. Par exemple, le VIH a un
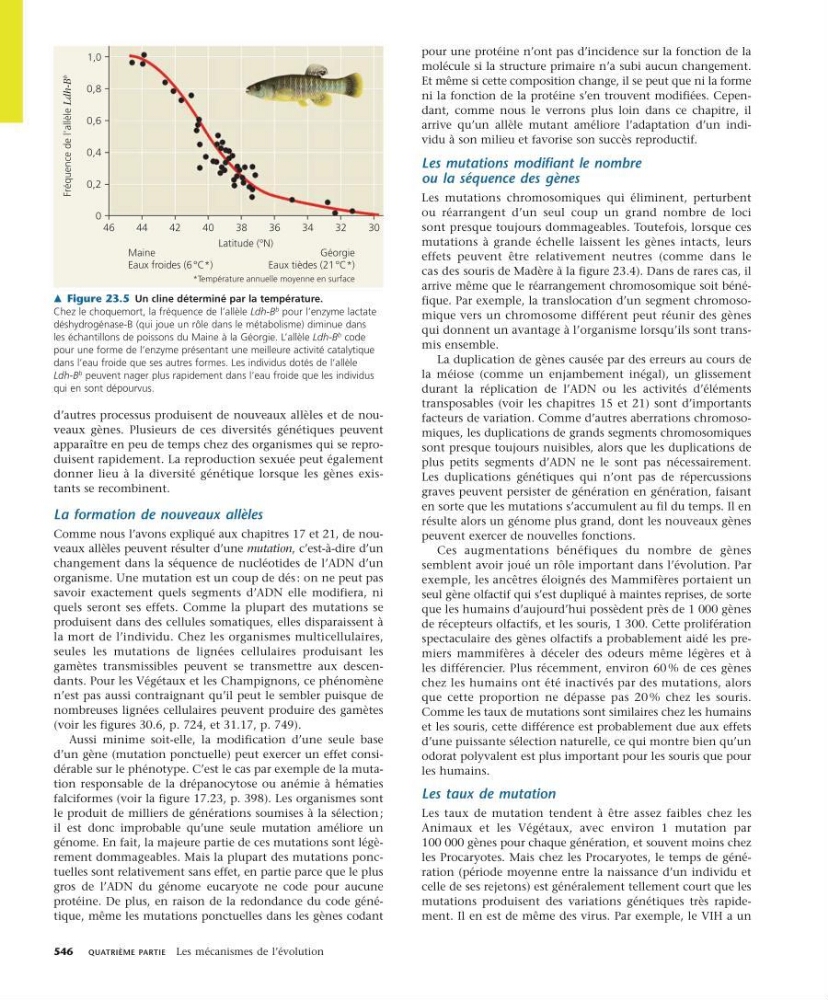
m Figure 23.5 Un cline déterminé par la température.
Chez le choquemort, la fréquence de l’allèle Ldh-B
b pour l’enzyme lactate
déshydrogénase-B (qui joue un rôle dans le métabolisme) diminue dans
les échantillons de poissons du Maine à la Géorgie. L’allèle Ldh-B
b code
pour une forme de l’enzyme présentant une meilleure activité catalytique
dans l’eau froide que ses autres formes. Les individus dotés de l’allèle
Ldh-B
b peuvent nager plus rapidement dans l’eau froide que les individus
qui en sont dépourvus.
1,0
0,8
0,6
0,4
0,2
0
44
46
42
40
38
36
34
32
30
Latitude (°N)
Maine
Eaux froides (6 °C*)
Géorgie
Eaux tièdes (21 °C*)
*Température annuelle moyenne en surface
Fréquence de l'allèle
Ldh-B
b