

chapitre 23 L’évolution des populations 545
Les biologistes doivent souvent décrire l’ampleur de la variation génétique dans une population particulière, tant pour
des caractères quantitatifs que qualitatifs. La variation génétique se mesure sur le plan du patrimoine génétique (diversité
génétique) et sur le plan moléculaire (diversité nucléotidique)
par l’analyse de l’ADN. La diversité génétique peut se quantifier par l’hétérozygosité moyenne, qui se définit comme
le pourcentage moyen de loci hétérozygotes. (Souvenez-vous
que l’individu hétérozygote a deux allèles différents pour un
locus donné, tandis que l’individu homozygote a deux allèles
identiques pour ce locus.) Par exemple, la mouche du vinaigre
(Drosophila melanogaster) est en moyenne hétérozygote pour
environ 1 920 de ses 13 700 loci et homozygote pour les autres.
On peut donc dire que la population de D. melanogaster a une
hétérozygosité moyenne de 14 %. Les analyses réalisées sur
cette espèce et sur de très nombreuses autres montrent que ce
degré de diversité génétique fournit bien assez de matériel
brut pour que la sélection naturelle puisse agir et produire un
changement adaptatif.
Comment les scientifiques déterminent-ils les loci hétérozygotes lorsqu’ils mesurent la diversité génétique ? Une des
méthodes consiste à mesurer les produits protéiques des gènes
par électrophorèse sur gel (voir la figure 20.9, p. 469). Cependant, cette méthode ne permet pas de détecter les mutations
silencieuses, c’est-à-dire les mutations qui modifient la séquence
d’un gène, mais pas la séquence d’acides aminés de la protéine
(voir la figure 17.24, p. 399). Pour inclure les mutations silencieuses dans leurs estimations de l’hétérozygosité, les chercheurs doivent utiliser d’autres méthodes quantitatives comme
l’amplification en chaîne par polymérase (ACP) et les analyses
de fragments de restriction (voir le chapitre 20).
Pour mesurer la diversité nucléotidique, les biologistes
comparent les séquences d’ADN de deux individus dans une
population, puis font la moyenne de toutes les données provenant de telles comparaisons. Le génome de D. melanogaster
compte environ 180 millions de nucléotides, et les séquences
de deux mouches du vinaigre, n’importe lesquelles, ne diffèrent
que par environ 1,8 million (1 %) de leurs nucléotides ; la
diversité nucléotidique des populations de D. melanogaster est
donc d’environ 1 %.
Pourquoi l’hétérozygosité moyenne a-t-elle tendance à être
plus grande que la diversité nucléotidique, comme c’est le cas
dans cet exemple ? Parce qu’un gène peut contenir des milliers de bases d’ADN. Une différence dans une des bases suffit
pour que les deux allèles de ce gène soient différents et augmentent l’hétérozygosité moyenne.
La variation entre les populations
La plupart des espèces présentent également une variation
géographique, c’est-à-dire des différences dans la composition génétique de populations distinctes d’une même espèce.
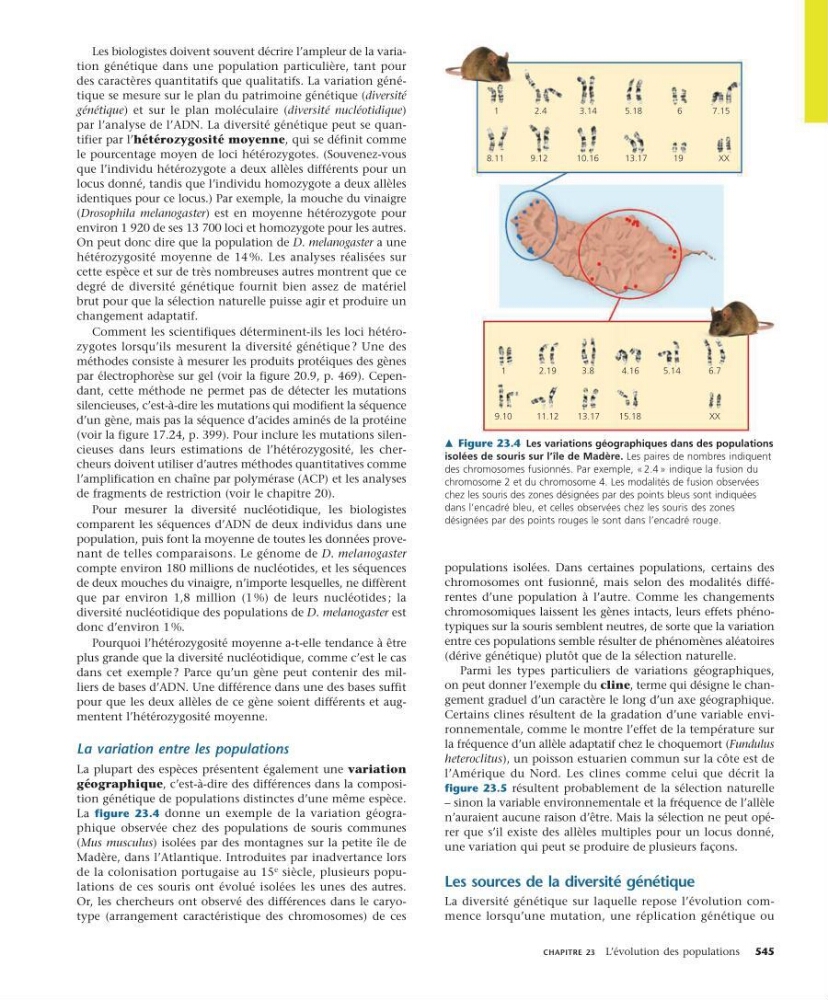
La figure 23.4 donne un exemple de la variation géographique observée chez des populations de souris communes
(Mus musculus) isolées par des montagnes sur la petite île de
Madère, dans l’Atlantique. Introduites par inadvertance lors
de la colonisation portugaise au 15
e
siècle, plusieurs populations de ces souris ont évolué isolées les unes des autres.
Or, les chercheurs ont observé des différences dans le caryotype (arrangement caractéristique des chromosomes) de ces
populations isolées. Dans certaines populations, certains des
chromosomes ont fusionné, mais selon des modalités différentes d’une population à l’autre. Comme les changements
chromosomiques laissent les gènes intacts, leurs effets phénotypiques sur la souris semblent neutres, de sorte que la variation
entre ces populations semble résulter de phéno mènes aléatoires
(dérive génétique) plutôt que de la sélection naturelle.
Parmi les types particuliers de variations géographiques,
on peut donner l’exemple du cline, terme qui désigne le changement graduel d’un caractère le long d’un axe géographique.
Certains clines résultent de la gradation d’une variable environnementale, comme le montre l’effet de la température sur
la fréquence d’un allèle adaptatif chez le choquemort (Fundulus
heteroclitus), un poisson estuarien commun sur la côte est de
l’Amérique du Nord. Les clines comme celui que décrit la
figure 23.5 résultent probablement de la sélection naturelle
– sinon la variable environnementale et la fréquence de l’allèle
n’auraient aucune raison d’être. Mais la sélection ne peut opérer que s’il existe des allèles multiples pour un locus donné,
une variation qui peut se produire de plusieurs façons.
Les sources de la diversité génétique
La diversité génétique sur laquelle repose l’évolution commence lorsqu’une mutation, une réplication génétique ou
m Figure 23.4 Les variations géographiques dans des populations
isolées de souris sur l’île de Madère. Les paires de nombres indiquent
des chromosomes fusionnés. Par exemple, « 2.4 » indique la fusion du
chromosome 2 et du chromosome 4. Les modalités de fusion observées
chez les souris des zones désignées par des points bleus sont indiquées
dans l’encadré bleu, et celles observées chez les souris des zones
désignées par des points rouges le sont dans l’encadré rouge.
1
1
2.19
3.8
4.16
5.14
6.7
9.10
11.12
13.17
15.18
XX
2.4
3.14
5.18
6
7.15
8.11
9.12
10.16
13.17
19
XX