

chapitre 21 Les génomes et leur évolution 509
distribués au hasard et a établi l’existence de sites spécifiques
sur lesquels les remaniements chromosomiques se sont produits à maintes reprises. Un certain nombre de ces « points
chauds » de recombinaison correspondent à des emplacements de réarrangements chromosomiques dans le génome
humain associés à des maladies congénitales. Les chercheurs
examinent, évidemment, d’autres sites afin de découvrir des
associations avec certaines maladies dont on connaît encore
mal le mécanisme.
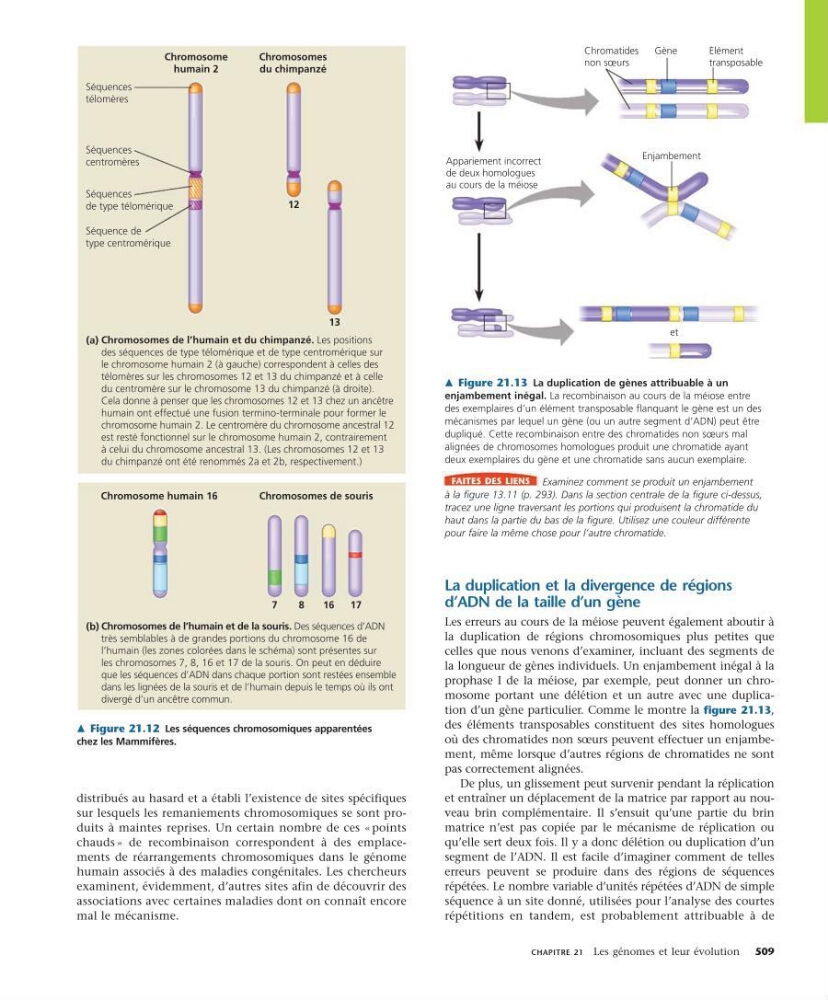
m Figure 21.12 Les séquences chromosomiques apparentées
chez les Mammifères.
m Figure 21.13 La duplication de gènes attribuable à un
enjambement inégal. La recombinaison au cours de la méiose entre
des exemplaires d’un élément transposable flanquant le gène est un des
mécanismes par lequel un gène (ou un autre segment d’ADN) peut être
dupliqué. Cette recombinaison entre des chromatides non sœurs mal
alignées de chromosomes homologues produit une chromatide ayant
deux exemplaires du gène et une chromatide sans aucun exemplaire.
FaItes des lIens Examinez comment se produit un enjambement
à la figure 13.11 (p. 293). Dans la section centrale de la figure ci-dessus,
tracez une ligne traversant les portions qui produisent la chromatide du
haut dans la partie du bas de la figure. Utilisez une couleur différente
pour faire la même chose pour l’autre chromatide.
Chromosome
humain 2
Chromosomes
du chimpanzé
Chromosome humain 16
Chromosomes de souris
12
13
7
8
16
17
Séquences
télomères
Séquences
centromères
Séquences
de type télomérique
Séquence de
type centromérique
(a) Chromosomes de l’humain et du chimpanzé. Les positions
des séquences de type télomérique et de type centromérique sur
le chromosome humain 2 (à gauche) correspondent à celles des
télomères sur les chromosomes 12 et 13 du chimpanzé et à celle
du centromère sur le chromosome 13 du chimpanzé (à droite).
Cela donne à penser que les chromosomes 12 et 13 chez un ancêtre
humain ont effectué une fusion termino-terminale pour former le
chromosome humain 2. Le centromère du chromosome ancestral 12
est resté fonctionnel sur le chromosome humain 2, contrairement
à celui du chromosome ancestral 13. (Les chromosomes 12 et 13
du chimpanzé ont été renommés 2a et 2b, respectivement.)
(b) Chromosomes de l’humain et de la souris. Des séquences d’ADN
très semblables à de grandes portions du chromosome 16 de
l’humain (les zones colorées dans le schéma) sont présentes sur
les chromosomes 7, 8, 16 et 17 de la souris. On peut en déduire
que les séquences d’ADN dans chaque portion sont restées ensemble
dans les lignées de la souris et de l’humain depuis le temps où ils ont
divergé d’un ancêtre commun.
Appariement incorrect
de deux homologues
au cours de la méiose
Chromatides
non sœurs
Élément
transposable
Gène
Enjambement
et
La duplication et la divergence de régions
d’aDN de la taille d’un gène
Les erreurs au cours de la méiose peuvent également aboutir à
la duplication de régions chromosomiques plus petites que
celles que nous venons d’examiner, incluant des segments de
la longueur de gènes individuels. Un enjambement inégal à la
prophase I de la méiose, par exemple, peut donner un chromosome portant une délétion et un autre avec une duplication d’un gène particulier. Comme le montre la figure 21.13,
des éléments transposables constituent des sites homologues
où des chromatides non sœurs peuvent effectuer un enjambement, même lorsque d’autres régions de chromatides ne sont
pas correctement alignées.
De plus, un glissement peut survenir pendant la réplication
et entraîner un déplacement de la matrice par rapport au nouveau brin complémentaire. Il s’ensuit qu’une partie du brin
matrice n’est pas copiée par le mécanisme de réplication ou
qu’elle sert deux fois. Il y a donc délétion ou duplication d’un
segment de l’ADN. Il est facile d’imaginer comment de telles
erreurs peuvent se produire dans des régions de séquences
répétées. Le nombre variable d’unités répétées d’ADN de simple
séquence à un site donné, utilisées pour l’analyse des courtes
répétitions en tandem, est probablement attribuable à de