

chapitre 20 La biotechnologie
465
correspondant. C’est d’ailleurs ce gène qui est utilisé dans la
fabrication d’insuline dont il sera question plus loin.
Le criblage d’une banque pour trouver
des clones contenant un gène recherché
Revenons maintenant aux résultats de la figure 20.4 ; nous
sommes main tenant prêts à cribler toutes les colonies contenant des plasmides recombinés (les colonies blanches) en
vue de trouver un clone de cellules contenant le gène de la
bglobine du colibri. On peut détecter l’ADN du gène par sa
capacité à s’associer, par l’appariement des bases de ce dernier,
à une séquence complémentaire portée par une autre molécule d’acide nucléique au moyen de l’hybridation moléculaire. La molécule complémentaire est un court acide
nucléique monocaténaire (de l’ARN ou de l’ADN), appelé
sonde nucléique. Si on connaît au moins une partie de la
séquence nucléotidique du gène (à partir de la protéine qu’il
code ou, comme dans notre cas, à partir de la séquence nucléotidique du gène d’une espèce apparentée, par exemple), il est
pos sible de synthétiser une sonde qui lui est complémentaire.
Ainsi, si une partie de la séquence d’un brin du gène recherché
se présente comme suit :
… CTCATCACCGGC …
5
3
on synthétise alors cette sonde de la façon suivante :
GAGTAGTGGCCG 5
3
Ensuite, on fixe à chaque molécule de la sonde un isotope
radioactif ou fluorescent ou encore une autre molécule. Ces
différents marqueurs permettront de repérer les fragments de
sonde qui se sont associés spécifiquement à un brin monocaténaire complémentaire porté par le gène recherché.
Il faut se rappeler que les clones dans notre banque génomique du colibri ont été entreposés sur une plaque multipuits (voir la figure 20.5c). Si on transfère quelques cellules
de chaque puits et qu’on les dépose en un point précis sur
une membrane de nylon ou de nitrocellulose, on peut sélectionner simultanément un grand nombre de clones pour
détecter la présence de l’ADN complémentaire à notre sonde
d’ADN (figure 20.7).
Après avoir trouvé l’emplacement d’un clone contenant
le gène de la bglobine, on place quelques cellules de cette
colonie dans un grand récipient contenant un milieu de
culture liquide. Après quelques jours de culture, on isole
facilement de nombreuses copies du gène pour des études.
Le gène cloné peut luimême servir de sonde pour l’identification de gènes semblables ou identiques contenus dans de
l’ADN provenant d’autres sources (l’ADN d’autres espèces
d’oiseaux, par exemple).
L’expression des gènes d’eucaryotes clonés
Quand un gène particulier a été cloné dans des cellules hôtes,
on peut synthétiser de grandes quantités de la protéine qu’il
code en vue d’effectuer des recherches ou pour des appli cations
intéressantes, ce que nous examinerons au concept 20.4. L’expression des gènes clonés en protéines s’effectue soit dans des
cellules bactériennes, soit dans des cellules eucaryotes ; chacun
de ces choix présente des avantages et des inconvénients.
Les systèmes d’expression bactériens
L’expression d’un gène cloné d’un Eucaryote dans des cellules
hôtes bactériennes risque de présenter certaines difficultés,
car ces deux types de cellules ne pos sèdent pas le même
mode d’expression génique. Pour remédier au problème que
posent les différences touchant les promoteurs et les autres
séquences de contrôle, on se sert habituellement d’un vecteur d’expression, c’estàdire un vecteur de clonage contenant un promoteur bactérien hautement actif situé juste en
amont d’un site de restriction, à l’endroit où le gène eucaryote
peut être inséré dans le bon cadre de lecture. La cellule hôte
bactérienne reconnaît alors le promoteur et exprime le gène
étranger qui lui est associé. De tels vecteurs d’expression permettent de synthétiser un grand nombre de protéines d’Eucaryotes par des cellules bactériennes.
Un autre obstacle à l’expression de gènes d’Eucaryotes clonés
par des bactéries réside dans la présence de longues régions
non codantes (introns) dans la plupart des gènes. En effet, les
gènes eucaryotes contenant des introns sont souvent très
longs et sont, de ce fait, difficiles à manipuler. De plus, comme
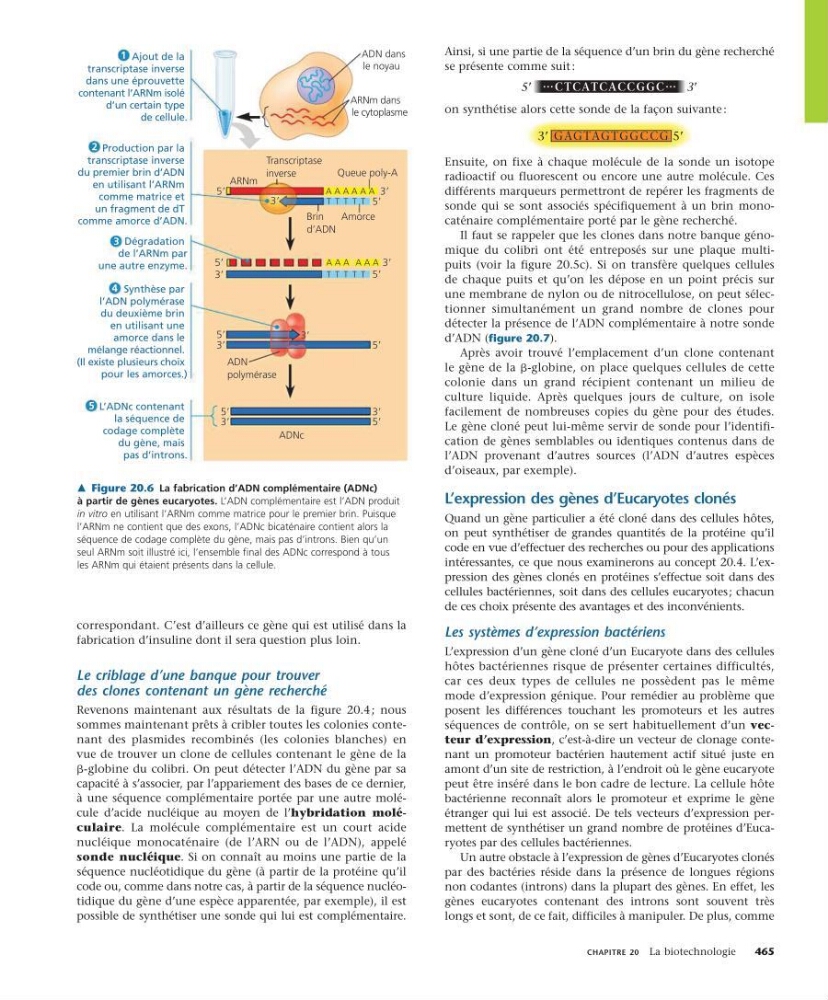
m Figure 20.6 La fabrication d’ADN complémentaire (ADNc)
à partir de gènes eucaryotes. L’ADN complémentaire est l’ADN produit
in vitro en utilisant l’ARNm comme matrice pour le premier brin. Puisque
l’ARNm ne contient que des exons, l’ADNc bicaténaire contient alors la
séquence de codage complète du gène, mais pas d’introns. Bien qu’un
seul ARNm soit illustré ici, l’ensemble final des ADNc correspond à tous
les ARNm qui étaient présents dans la cellule.
Ajout de la
transcriptase inverse
dans une éprouvette
contenant l’ARNm isolé
d’un certain type
de cellule.
1
Production par la
transcriptase inverse
du premier brin d’ADN
en utilisant l’ARNm
comme matrice et
un fragment de dT
comme amorce d’ADN.
2
Synthèse par
l’ADN polymérase
du deuxième brin
en utilisant une
amorce dans le
mélange réactionnel.
(Il existe plusieurs choix
pour les amorces.)
4
L’ADNc contenant
la séquence de
codage complète
du gène, mais
pas d’introns.
5
Dégradation
de l’ARNm par
une autre enzyme.
3
ADN dans
le noyau
ARNm dans
le cytoplasme
5Ј
ARNm
Transcriptase
inverse
Queue poly-A
Amorce
Brin
d’ADN
ADN
polymérase
ADNc
3Ј
5Ј
A A A A A
T T T T T
A
5Ј
3Ј
5Ј
3Ј
5Ј
5Ј
3Ј
5Ј
3Ј
3Ј
3Ј
3Ј
5Ј
A A A A A
T T T T T
A