

chapitre 18 La régulation de l’expression génique 429
affectant un processus aussi fondamental que la segmentation
devaient être létales au stade embryonnaire, c’est-à-dire
produire des phénotypes conduisant à la mort des embryons
ou des larves. Étant donné que de tels organismes ne se reproduisent jamais, il serait impossible de les étudier génétiquement. Les chercheurs ont réglé ce problème en orientant
leur recherche vers les mutations récessives transmissibles
par des individus hétérozygotes qui agissent comme porteurs géné tiques. Troisièmement, on sait que les déterminants
cytoplasmiques présents dans l’ovocyte jouent un rôle dans la
détermination des axes ; il fallait donc étudier les gènes de
la mère en plus de ceux de l’embryon. Nous allons poursuivre
l’étude des gènes de la mère alors que nous examinerons plus
précisément la façon dont l’axe corporel antéropostérieur est
établi dans l’ovocyte en cours de développement.
Nüsslein-Volhard et Wieschaus ont commencé leurs
recherches sur les gènes de segmentation en exposant les drosophiles à une substance chimique mutagène afin de provoquer la mutation de leurs gamètes. Ils accouplaient les
drosophiles mutagénisées puis ils recherchaient parmi leurs
descendants les embryons morts (ou les larves) portant une
segmentation anormale ou d’autres anomalies. Par exemple,
pour trouver des gènes qui pouvaient fixer l’axe antéropostérieur, ils cherchaient des embryons ou des larves avec des extrémités anormales telles que deux têtes ou deux queues, prédisant
que de telles anomalies seraient le résultat de mutations dans
les gènes maternels ayant pour fonction d’établir correctement
la position de la tête ou de la queue des descendants.
Par cette approche, Nüsslein-Volhard et Wieschaus ont
réussi à isoler environ 1 200 gènes nécessaires au plan d’organisation pendant le développement embryonnaire. Parmi ceuxci, 120 sont essentiels à une segmentation normale. Au bout
de plusieurs années, les deux chercheurs ont été en mesure
de grouper ces gènes de segmentation selon leurs fonctions
générales, de les cartographier et d’en cloner un grand nombre
afin de continuer leur étude en laboratoire. Grâce à leurs
études, on connaît maintenant en détail les aspects moléculaires des premières étapes des plans d’organisation de Drosophila melanogaster.
Leurs travaux ainsi que ceux de Lewis ont permis de tracer
une image cohérente du développement embryonnaire de
Drosophila melanogaster. Cela a valu aux trois chercheurs un
prix Nobel en 1995.
Poursuivons notre étude des gènes que Nüsslein-Volhard,
Wieschaus et leurs collaborateurs ont trouvés pour les déterminants cytoplasmiques déposés dans l’ovocyte par l’organisme maternel. Ces gènes fixent le plan initial de l’embryon
en commandant l’expression génique dans de larges régions
du jeune embryon.
La fixation de l’orientation des axes
Comme nous l’avons déjà vu, les déterminants cytoplasmiques dans l’ovocyte sont les substances conduisant, au
début, à la mise en place des axes corporels de Drosophila
melanogaster. Ces substances sont codées par des gènes maternels nommés, avec à-propos, gènes à effet maternel. Dans
le cas d’une mutation récessive, lorsqu’ils sont présents chez
la mère à l’état homozygote, ces gènes produisent un phénotype mutant chez tous les descendants, et ce, quel que soit
leur génotype (et celui du père) ; ces gènes particuliers se distinguent donc des autres gènes (gènes à effet zygotique) par
leur comportement. En ce qui a trait au développement de la
drosophile, les protéines ou l’ARNm produits par les gènes à
effet maternel sont introduits dans l’ovocyte pendant qu’il se
trouve encore dans l’ovaire. Si l’un de ces gènes est mutant
chez la mère, son produit est défectueux (ou inexistant). Les
ovocytes sont anormaux et ne se développent pas adéquatement après avoir été fécondés.
Comme ils commandent l’orientation (polarité) de l’œuf
et, par conséquent, celle de l’embryon, les gènes à effet
maternel sont aussi appelés gènes de polarité de l’œuf.
Un groupe de gènes de ce type détermine l’orientation de
l’axe antéropostérieur de l’embryon, et un autre groupe établit l’axe dorsoventral. Généralement, les mutations de ces
gènes sont, à l’instar des mutations des gènes de la segmentation, létales au stade embryonnaire.
Le gène bicoïd : un morphogène déterminant les structures de
la tête Afin d’illustrer comment les gènes à effet maternel
déterminent l’orientation des axes de l’organisme en train de
se former, prenons un de ces gènes, le gène bicoïd (mot
anglais signifiant « à deux queues »), et voyons comment il
agit. Lorsque la mère porte deux allèles mutants de ce gène,
la moitié antérieure de l’embryon manque, et celui-ci possède des structures postérieures à ses deux extrémités
(figure 18.21). Ce phénotype a permis à Nüsslein- Volhard
et à ses collègues d’émettre l’hypothèse selon laquelle le
produit du gène bicoïd de la mère est essentiel à l’établissement de l’extrémité antérieure de l’embryon et qu’il est
concentré là où doit se trouver cette extrémité. C’est un
exemple particulier de l’hypothèse des gradients de morphogènes
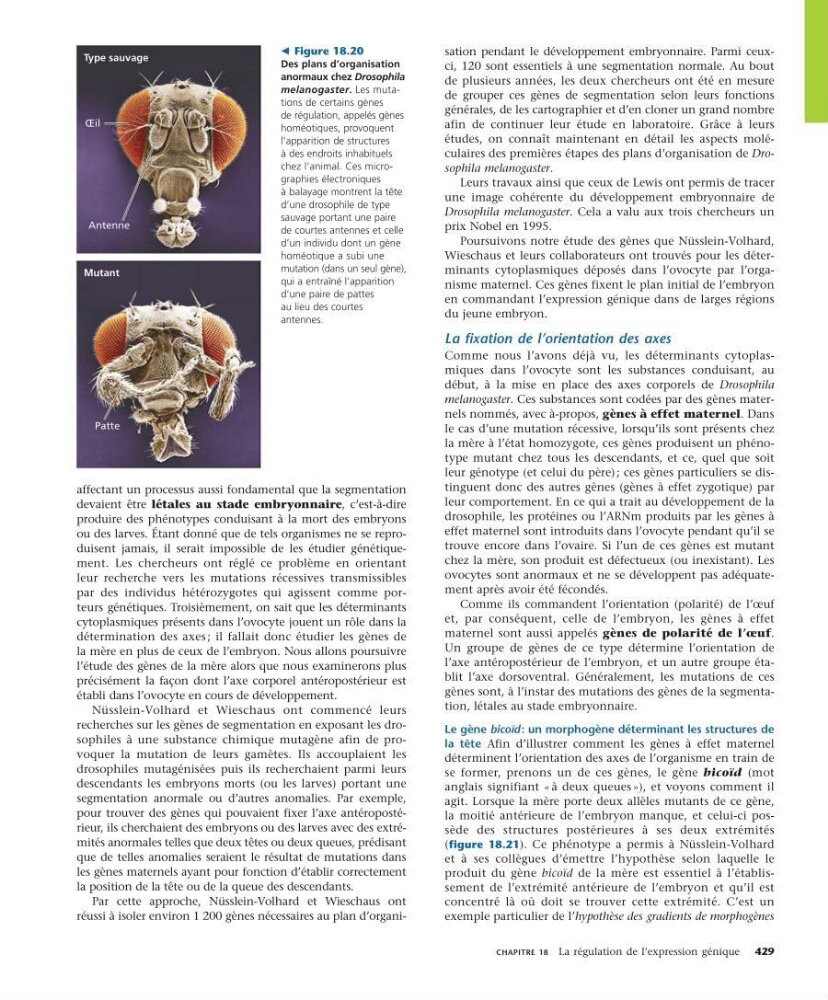
Type sauvage
Mutant
Œil
Antenne
Patte
Figure 18.20
Des plans d’organisation
anormaux chez Drosophila
melanogaster. Les mutations de certains gènes
de régulation, appelés gènes
homéotiques, provoquent
l’apparition de structures
à des endroits inhabituels
chez l’animal. Ces micrographies électroniques
à balayage montrent la tête
d’une drosophile de type
sauvage portant une paire
de courtes antennes et celle
d’un individu dont un gène
homéotique a subi une
mutation (dans un seul gène),
qui a entraîné l’apparition
d’une paire de pattes
au lieu des courtes
antennes.