

chapitre 18 La régulation de l’expression génique 421
de maturation avant de devenir des protéines fonctionnelles.
Par exemple, c’est le clivage du polypeptide initial de l’insuline (proinsuline) qui aboutit à la formation d’une hormone
active. Dans d’autres cas, c’est le repliement de la protéine qui
lui confère ses propriétés fonctionnelles. Les protéines peuvent
aussi subir un mécanisme d’épissage : ce phénomène était
connu chez les Végétaux et les Procaryotes, mais on l’observe
également dans des cellules de Mammifères. De plus, de nombreuses protéines ne deviennent fonctionnelles que si elles
subissent certaines modifications chimiques. Ainsi, les protéines régulatrices sont souvent activées ou inactivées par
l’ajout réversible de groupements phosphate ; de même, des
glucides doivent être ajoutés aux protéines destinées à la face
externe des membranes plas miques animales. Ces dernières
(et de nombreuses autres) ne peuvent être fonctionnelles que
si elles sont transportées vers des sites précis de la cellule. La
régulation peut s’exercer à n’importe quelle étape de la modification ou du transport des protéines.
Enfin, la durée de vie des protéines normales dans la cellule est strictement limitée par une dégradation sélective. De
nombreuses protéines, comme les cyclines régulant le cycle
cellulaire, doivent avoir une durée de vie relativement courte
pour permettre à la cellule de fonctionner de façon adéquate
(voir la figure 12.17, p. 272). La cellule marque souvent les
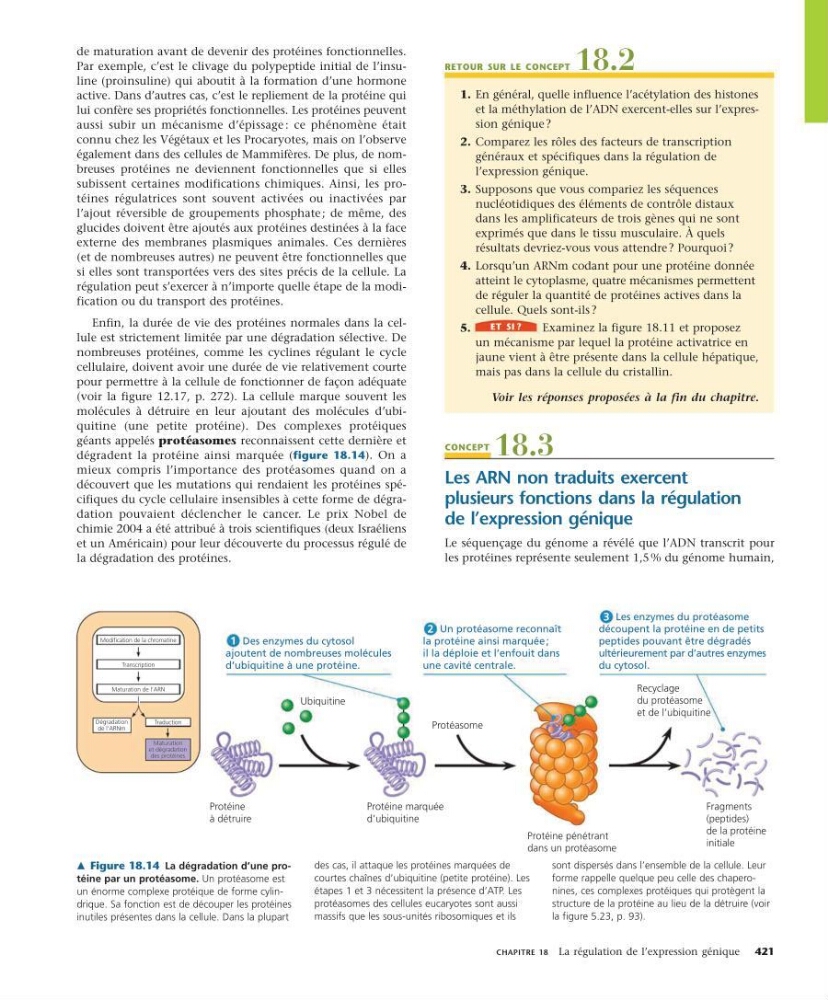
molé cules à détruire en leur ajoutant des molécules d’ubiquitine (une petite protéine). Des complexes protéiques
géants appelés protéasomes reconnaissent cette dernière et
dégradent la protéine ainsi marquée (figure 18.14). On a
mieux compris l’importance des protéasomes quand on a
découvert que les mutations qui rendaient les protéines spécifiques du cycle cellulaire insensibles à cette forme de dégradation pouvaient déclencher le cancer. Le prix Nobel de
chimie 2004 a été attribué à trois scientifiques (deux Israéliens
et un Américain) pour leur découverte du processus régulé de
la dégra dation des protéines.
retour sur le ConCept 18.2
1. En général, quelle influence l’acétylation des histones
et la méthylation de l’ADN exercent-elles sur l’expression génique ?
2. Comparez les rôles des facteurs de transcription
généraux et spécifiques dans la régulation de
l’expression génique.
3. Supposons que vous compariez les séquences
nucléotidiques des éléments de contrôle distaux
dans les amplificateurs de trois gènes qui ne sont
exprimés que dans le tissu musculaire. À quels
résultats devriez-vous vous attendre ? Pourquoi ?
4. Lorsqu’un ARNm codant pour une protéine donnée
atteint le cytoplasme, quatre mécanismes permettent
de réguler la quantité de protéines actives dans la
cellule. Quels sont-ils ?
5.
et sI ?
Examinez la figure 18.11 et proposez
un mécanisme par lequel la protéine activatrice en
jaune vient à être présente dans la cellule hépatique,
mais pas dans la cellule du cristallin.
Voir les réponses proposées à la fin du chapitre.
ConCept
18.3
Les arN non traduits exercent
plusieurs fonctions dans la régulation
de l’expression génique
Le séquençage du génome a révélé que l’ADN transcrit pour
les protéines représente seulement 1,5 % du génome humain,
Modification de la chromatine
Transcription
Maturation de l’ARN
Dégradation
de l’ARNm
Traduction
Maturation
et dégradation
des protéines
Protéine
à détruire
Protéine marquée
d’ubiquitine
Ubiquitine
Protéasome
Recyclage
du protéasome
et de l’ubiquitine
Fragments
(peptides)
de la protéine
initiale
Protéine pénétrant
dans un protéasome
Des enzymes du cytosol
ajoutent de nombreuses molécules
d’ubiquitine à une protéine.
1
Un protéasome reconnaît
la protéine ainsi marquée ;
il la déploie et l’enfouit dans
une cavité centrale.
2
Les enzymes du protéasome
découpent la protéine en de petits
peptides pouvant être dégradés
ultérieurement par d’autres enzymes
du cytosol.
3
m Figure 18.14 La dégradation d’une protéine par un protéasome. Un protéasome est
un énorme complexe protéique de forme cylindrique. Sa fonction est de découper les protéines
inutiles présentes dans la cellule. Dans la plupart
des cas, il attaque les protéines marquées de
courtes chaînes d’ubiquitine (petite protéine). Les
étapes 1 et 3 nécessitent la présence d’ATP. Les
protéasomes des cellules eucaryotes sont aussi
massifs que les sous-unités ribosomiques et ils
sont dispersés dans l’ensemble de la cellule. Leur
forme rappelle quelque peu celle des chaperonines, ces complexes protéiques qui protègent la
structure de la protéine au lieu de la détruire (voir
la figure 5.23, p. 93).