

420 trOiSiÈMe partie La génétique
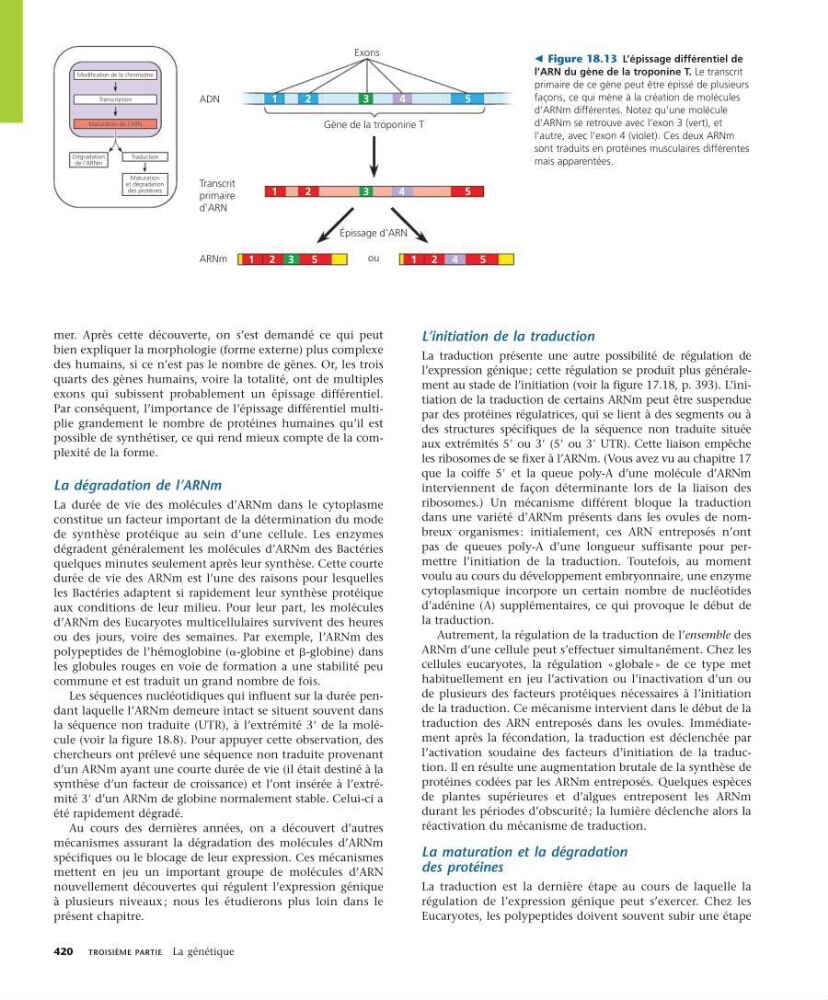
mer. Après cette découverte, on s’est demandé ce qui peut
bien expliquer la morphologie (forme externe) plus complexe
des humains, si ce n’est pas le nombre de gènes. Or, les trois
quarts des gènes humains, voire la totalité, ont de multiples
exons qui subissent probablement un épissage différentiel.
Par conséquent, l’importance de l’épissage différentiel multiplie grandement le nombre de protéines humaines qu’il est
possible de synthétiser, ce qui rend mieux compte de la complexité de la forme.
La dégradation de l’ARNm
La durée de vie des molécules d’ARNm dans le cytoplasme
constitue un facteur important de la détermination du mode
de synthèse protéique au sein d’une cellule. Les enzymes
dégradent généralement les molécules d’ARNm des Bactéries
quelques minutes seulement après leur synthèse. Cette courte
durée de vie des ARNm est l’une des raisons pour lesquelles
les Bactéries adaptent si rapidement leur synthèse protéique
aux conditions de leur milieu. Pour leur part, les molécules
d’ARNm des Eucaryotes multicellulaires survivent des heures
ou des jours, voire des semaines. Par exemple, l’ARNm des
polypeptides de l’hémoglobine (a-globine et b-globine) dans
les globules rouges en voie de formation a une stabilité peu
commune et est traduit un grand nombre de fois.
Les séquences nucléotidiques qui influent sur la durée pendant laquelle l’ARNm demeure intact se situent souvent dans
la séquence non traduite (UTR), à l’extrémité 39 de la molécule (voir la figure 18.8). Pour appuyer cette observation, des
chercheurs ont prélevé une séquence non traduite provenant
d’un ARNm ayant une courte durée de vie (il était destiné à la
synthèse d’un facteur de croissance) et l’ont insérée à l’extrémité 39 d’un ARNm de globine normalement stable. Celui-ci a
été rapidement dégradé.
Au cours des dernières années, on a découvert d’autres
mécanismes assurant la dégradation des molécules d’ARNm
spécifiques ou le blocage de leur expression. Ces mécanismes
mettent en jeu un important groupe de molécules d’ARN
nouvellement découvertes qui régulent l’expression génique
à plusieurs niveaux ; nous les étudierons plus loin dans le
présent chapitre.
L’initiation de la traduction
La traduction présente une autre possibilité de régulation de
l’expression génique ; cette régulation se produit plus généralement au stade de l’initiation (voir la figure 17.18, p. 393). L’initiation de la traduction de certains ARNm peut être suspendue
par des protéines régulatrices, qui se lient à des segments ou à
des structures spécifiques de la séquence non traduite située
aux extrémités 59 ou 39 (59 ou 39 UTR). Cette liaison empêche
les ribosomes de se fixer à l’ARNm. (Vous avez vu au chapitre 17
que la coiffe 59 et la queue poly-A d’une molécule d’ARNm
interviennent de façon déterminante lors de la liaison des
ribosomes.) Un mécanisme différent bloque la traduction
dans une variété d’ARNm présents dans les ovules de nombreux orga nismes : initialement, ces ARN entreposés n’ont
pas de queues poly-A d’une longueur suffisante pour permettre l’initiation de la traduction. Toutefois, au moment
voulu au cours du développement embryonnaire, une enzyme
cytoplasmique incorpore un certain nombre de nucléotides
d’adénine (A) supplémentaires, ce qui provoque le début de
la traduction.
Autrement, la régulation de la traduction de l’ensemble des
ARNm d’une cellule peut s’effectuer simultanément. Chez les
cellules eucaryotes, la régulation « globale » de ce type met
habituellement en jeu l’activation ou l’inactivation d’un ou
de plusieurs des facteurs protéiques nécessaires à l’initiation
de la traduction. Ce mécanisme intervient dans le début de la
traduction des ARN entreposés dans les ovules. Immédiatement après la fécondation, la traduction est déclenchée par
l’activation soudaine des facteurs d’initiation de la traduction. Il en résulte une augmentation brutale de la synthèse de
protéines codées par les ARNm entreposés. Quelques espèces
de plantes supérieures et d’algues entreposent les ARNm
durant les périodes d’obscurité ; la lumière déclenche alors la
réactivation du mécanisme de traduction.
La maturation et la dégradation
des protéines
La traduction est la dernière étape au cours de laquelle la
régulation de l’expression génique peut s’exercer. Chez les
Eucaryotes, les polypeptides doivent souvent subir une étape
Transcrit
primaire
d’ARN
Épissage d’ARN
ADN
1
2
3
4
5
1
1 2 3
5
1 2 4
5
2
3
4
5
ARNm
Exons
Gène de la troponine T
ou
Modification de la chromatine
Transcription
Maturation de l’ARN
Dégradation
de l’ARNm
Traduction
Maturation
et dégradation
des protéines
Figure 18.13 L’épissage différentiel de
l’ARN du gène de la troponine T. Le transcrit
primaire de ce gène peut être épissé de plusieurs
façons, ce qui mène à la création de molécules
d’ARNm différentes. Notez qu’une molécule
d’ARNm se retrouve avec l’exon 3 (vert), et
l’autre, avec l’exon 4 (violet). Ces deux ARNm
sont traduits en protéines musculaires différentes
mais apparentées.