

chapitre 18 La régulation de l’expression génique 419
récepteurs situés à la surface de la cellule. Ils ne pénètrent
jamais dans celle-ci. Ces molécules peuvent assurer la régulation génique indirectement en mettant en marche des
voies de transduction menant à l’activation de facteurs de
transcription spécifiques (activateurs ou répresseurs) (voir la
figure 11.15, p. 419). La régulation coordonnée de ces voies
est la même que dans le cas des hormones stéroïdes : les
gènes qui ont les mêmes éléments de contrôle sont activés
par les mêmes stimulus chimiques. Les systèmes de coordination de la régulation génique sont probablement apparus
tôt dans l’histoire de l’évolution.
L’architecture nucléaire et l’expression génique
À la figure 16.23 (p. 372) vous avez vu que chaque chromosome dans le noyau à l’interphase occupe un territoire
distinct. Les chromosomes ne sont pas complètement isolés,
cependant. On a récemment mis au point des techniques de
pontage (cross link) (formation de liens particuliers au niveau
de certains sites de l’ADN) qui permettent aux chercheurs de
déterminer quelles régions de ces chromosomes s’associent
l’une à l’autre pendant l’interphase. Ces études révèlent que
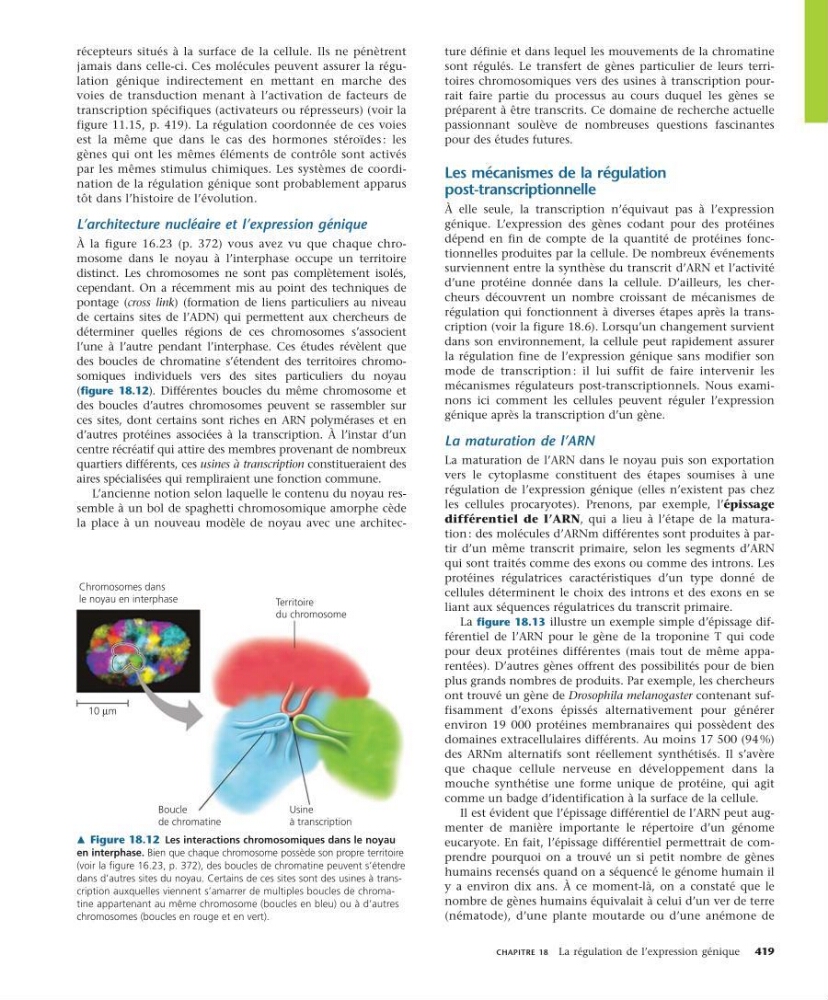
des boucles de chromatine s’étendent des territoires chromosomiques individuels vers des sites particuliers du noyau
(figure 18.12). Différentes boucles du même chromosome et
des boucles d’autres chromosomes peuvent se rassembler sur
ces sites, dont certains sont riches en ARN polymérases et en
d’autres protéines associées à la transcription. À l’instar d’un
centre récréatif qui attire des membres provenant de nombreux
quartiers différents, ces usines à transcription constitueraient des
aires spécialisées qui rempliraient une fonction commune.
L’ancienne notion selon laquelle le contenu du noyau ressemble à un bol de spaghetti chromosomique amorphe cède
la place à un nouveau modèle de noyau avec une architecture définie et dans lequel les mouvements de la chromatine
sont régulés. Le transfert de gènes particulier de leurs territoires chromosomiques vers des usines à transcription pourrait faire partie du processus au cours duquel les gènes se
préparent à être transcrits. Ce domaine de recherche actuelle
passionnant soulève de nombreuses questions fascinantes
pour des études futures.
Les mécanismes de la régulation
post-transcriptionnelle
À elle seule, la transcription n’équivaut pas à l’expression
génique. L’expression des gènes codant pour des protéines
dépend en fin de compte de la quantité de protéines fonctionnelles produites par la cellule. De nombreux événements
surviennent entre la synthèse du transcrit d’ARN et l’activité
d’une protéine donnée dans la cellule. D’ailleurs, les chercheurs découvrent un nombre croissant de mécanismes de
régulation qui fonctionnent à diverses étapes après la transcription (voir la figure 18.6). Lorsqu’un changement survient
dans son environnement, la cellule peut rapidement assurer
la régulation fine de l’expression génique sans modifier son
mode de transcription : il lui suffit de faire intervenir les
mécanismes régulateurs post-transcriptionnels. Nous examinons ici comment les cellules peuvent réguler l’expression
génique après la transcription d’un gène.
La maturation de l’ARN
La maturation de l’ARN dans le noyau puis son exportation
vers le cytoplasme constituent des étapes soumises à une
régulation de l’expression génique (elles n’existent pas chez
les cellules procaryotes). Prenons, par exemple, l’épissage
différentiel de l’ARN, qui a lieu à l’étape de la maturation : des molécules d’ARNm différentes sont produites à partir d’un même transcrit primaire, selon les segments d’ARN
qui sont traités comme des exons ou comme des introns. Les
protéines régulatrices caractéristiques d’un type donné de
cellules déterminent le choix des introns et des exons en se
liant aux séquences régulatrices du transcrit primaire.
La figure 18.13 illustre un exemple simple d’épissage différentiel de l’ARN pour le gène de la troponine T qui code
pour deux protéines différentes (mais tout de même apparentées). D’autres gènes offrent des possibilités pour de bien
plus grands nombres de produits. Par exemple, les chercheurs
ont trouvé un gène de Drosophila melanogaster contenant suffisamment d’exons épissés alternativement pour générer
environ 19 000 protéines membranaires qui possèdent des
domaines extracellulaires différents. Au moins 17 500 (94 %)
des ARNm alternatifs sont réellement synthétisés. Il s’avère
que chaque cellule nerveuse en développement dans la
mouche synthétise une forme unique de protéine, qui agit
comme un badge d’identification à la surface de la cellule.
Il est évident que l’épissage différentiel de l’ARN peut augmenter de manière importante le répertoire d’un génome
eucaryote. En fait, l’épissage différentiel permettrait de comprendre pourquoi on a trouvé un si petit nombre de gènes
humains recensés quand on a séquencé le génome humain il
y a environ dix ans. À ce moment-là, on a constaté que le
nombre de gènes humains équivalait à celui d’un ver de terre
(nématode), d’une plante moutarde ou d’une anémone de
Chromosomes dans
le noyau en interphase
Territoire
du chromosome
Usine
à transcription
Boucle
de chromatine
10 µm
m Figure 18.12 Les interactions chromosomiques dans le noyau
en interphase. Bien que chaque chromosome possède son propre territoire
(voir la figure 16.23, p. 372), des boucles de chromatine peuvent s’étendre
dans d’autres sites du noyau. Certains de ces sites sont des usines à transcription auxquelles viennent s’amarrer de multiples boucles de chromatine appartenant au même chromosome (boucles en bleu) ou à d’autres
chromosomes (boucles en rouge et en vert).