

422 trOiSiÈMe partie La génétique
ce qui correspond d’ailleurs aux génomes d’autres organismes
eucaryotes multicellulaires. Une très petite fraction de l’ADN
non transcrit pour les protéines est constituée de gènes
codant pour les ARN tels que l’ARN ribosomique et l’ARN de
transfert. Jusqu’à récemment, on supposait que la majeure
partie du restant de l’ADN n’était pas transcrit. Puisqu’il ne
codait pas pour des protéines ou quelques types connus
d’ARN, on pensait que cet ADN ne contenait pas d’information génétique importante. Cependant, un déluge de données
récentes a infirmé cette idée. Par exemple, une étude approfondie d’une région comprenant 1 % du génome humain a
démontré que plus de 90 % de cette région était transcrite.
Les introns ne rendent compte que d’une fraction de cet ARN
transcrit, non traduit. Ces résultats ainsi que d’autres révèlent
qu’une partie importante du génome peut être transcrite en
ARN non codants pour des protéines (appelés également ARN
non codants, ou ARNnc), dont une variété de petits ARN. Alors
que de nombreuses questions portant sur les fonctions de ces
ARN demeurent sans réponses, les chercheurs découvrent
chaque jour davantage de preuves de leurs rôles biologiques.
Ces récentes découvertes sont fascinantes, car elles révèlent
l’existence, dans la cellule, d’une grande variété de molécules
d’ARN qui exerceraient des rôles essentiels dans la régulation
de l’expression génique ; ces ARN étaient largement passés
inaperçus jusqu’à maintenant. Il faut manifestement revoir
notre conception selon laquelle les ARN les plus importants
dans la cellule sont les ARNm parce qu’ils codent pour les
protéines. Il s’agit d’un tournant majeur dans la pensée des
biologistes, et vous en êtes témoin comme étudiant en abordant ce domaine d’étude. C’est comme si notre admiration
pour une vedette rock célèbre nous avait empêchés de voir les
nombreux musiciens et compositeurs qui travaillent derrière
la scène.
On sait que la régulation par les petits et les gros ARNnc
se produit en plusieurs points dans la voie de l’expression
génique, dont la traduction de l’ARNm et la modification de
la chromatine. Nous nous pencherons surtout sur deux types
de petits ARNnc largement étudiés au cours des dernières
années ; leur importance a été reconnue lors de l’attribution
du prix Nobel de physiologie et de médecine 2006.
Les effets des microarN et des petits arN
interférents sur les arNm
Depuis 1993, à la suite de nombreuses études, des chercheurs
ont découvert de petites molécules d’ARN monocaténaire, les
microARN (miARN), capables de se lier à des séquences
complémentaires de molécules d’ARNm. Les miARN sont
produits à partir de précurseurs d’ARN plus longs qui se
replient sur eux-mêmes et forment une ou plusieurs courtes
structures bicaténaires en épingle à cheveux, chacune étant
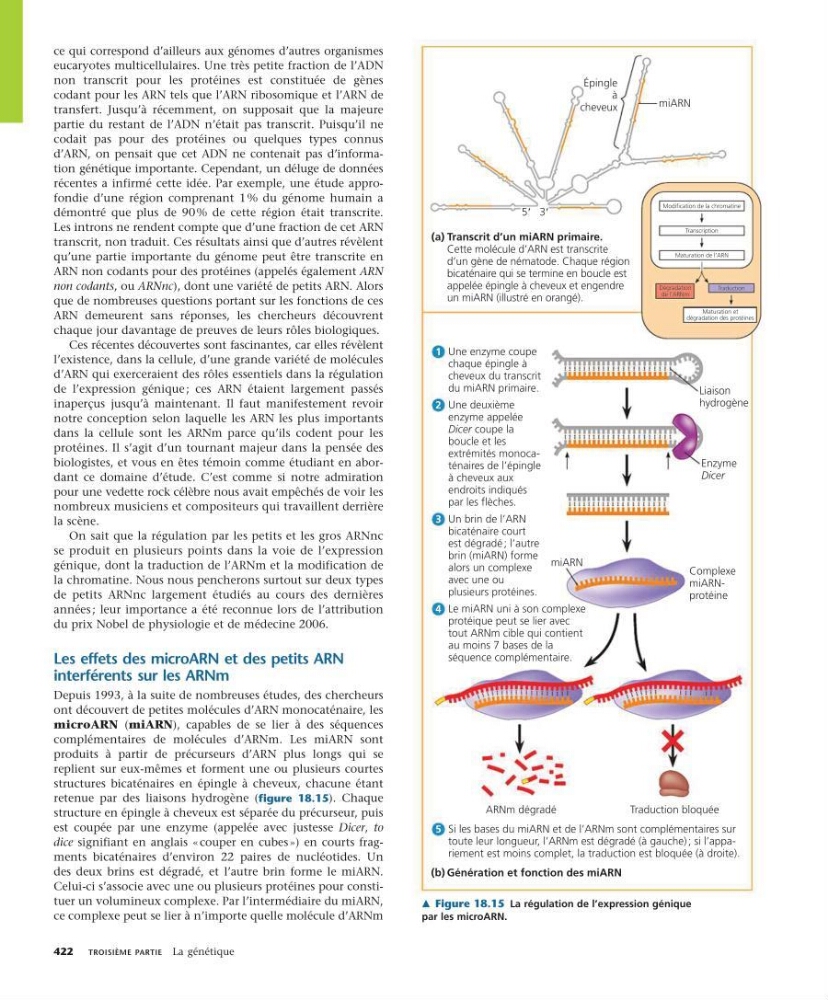
retenue par des liaisons hydrogène (figure 18.15). Chaque
structure en épingle à cheveux est séparée du précurseur, puis
est coupée par une enzyme (appelée avec justesse Dicer, to
dice signifiant en anglais « couper en cubes ») en courts fragments bicaténaires d’environ 22 paires de nucléotides. Un
des deux brins est dégradé, et l’autre brin forme le miARN.
Celui-ci s’associe avec une ou plusieurs protéines pour constituer un volumineux complexe. Par l’intermédiaire du miARN,
ce complexe peut se lier à n’importe quelle molécule d’ARNm
miARN
(a)
Liaison
hydrogène
Enzyme
Dicer
Complexe
miARNprotéine
ARNm dégradé
Traduction bloquée
miARN
Épingle
à
cheveux
Transcrit d’un miARN primaire.
Cette molécule d’ARN est transcrite
d’un gène de nématode. Chaque région
bicaténaire qui se termine en boucle est
appelée épingle à cheveux et engendre
un miARN (illustré en orangé).
(b) Génération et fonction des miARN
Une enzyme coupe
chaque épingle à
cheveux du transcrit
du miARN primaire.
1
Une deuxième
enzyme appelée
Dicer coupe la
boucle et les
extrémités monocaténaires de l’épingle
à cheveux aux
endroits indiqués
par les flèches.
2
Un brin de l’ARN
bicaténaire court
est dégradé ; l’autre
brin (miARN) forme
alors un complexe
avec une ou
plusieurs protéines.
3
Le miARN uni à son complexe
protéique peut se lier avec
tout ARNm cible qui contient
au moins 7 bases de la
séquence complémentaire.
4
Si les bases du miARN et de l’ARNm sont complémentaires sur
toute leur longueur, l’ARNm est dégradé (à gauche) ; si l’appariement est moins complet, la traduction est bloquée (à droite).
5
5 3
Modification de la chromatine
Transcription
Maturation de l’ARN
Dégradation
de l’ARNm
Traduction
Maturation et
dégradation des protéines
m Figure 18.15 La régulation de l’expression génique
par les microARN.