

chapitre 18 La régulation de l’expression génique 415
melanogaster, par exemple, des expériences ont révélé qu’une
enzyme particulière de la modification des histones recrute
une enzyme de méthylation de l’ADN au niveau d’une région
particulière et que les deux enzymes s’associent pour inhiber
la transcription d’un groupe particulier de gènes. On a également découvert des protéines qui effectuent le travail inverse :
elles se lient d’abord à l’ADN méthylé et recrutent ensuite les
enzymes de la désacétylation des histones. La répression de la
transcription serait donc effectuée par un double mécanisme
mettant en jeu la méthylation de l’ADN et la désacétylation
des histones.
Les chercheurs accumulent de plus en plus de preuves
confirmant l’importance de l’information épigénétique dans
la régulation de l’expression génique. Ainsi, des chercheurs
canadiens de l’Université McGill, à Montréal, ont montré
que les caresses maternelles chez le rat déméthylent et activent certains gènes du cerveau intervenant dans la réaction
au stress. Par ailleurs, les variations épigénétiques expliqueraient pourquoi un jumeau identique contracte une maladie
transmise génétiquement, comme la schizophrénie, alors que
l’autre en est exempt, bien qu’ils aient des génomes identiques. Certains cancers semblent s’accompagner de modifications des processus normaux de la méthylation de l’ADN,
et ces modifications sont associées à une expression génique
inappropriée. Manifestement, les enzymes qui agissent sur la
structure de la chromatine font partie intégrante des mécanismes cellulaires de régulation de la transcription.
La régulation de l’initiation
de la transcription
Les enzymes de modification de la chromatine assurent une
régulation initiale de l’expression génique en rendant une
région donnée de l’ADN plus ou moins capable de se lier aux
outils de transcription. Une fois que la chromatine d’un gène
est parfaitement modifiée pour l’expression, l’initiation de la
transcription représente le point suivant le plus important de
la régulation de l’expression génique. Comme chez les Bactéries, la régulation de l’initiation de la transcription chez les
Eucaryotes fait intervenir des protéines qui se lient à l’ADN et
facilitent ou inhibent la liaison de l’ARN polymérase. Le processus est plus compliqué chez les Eucaryotes, toutefois. Mais
avant d’étudier comment les cellules eucaryotes assurent la
régulation de leur transcription, revoyons la structure d’un
gène typique des Eucaryotes et de son transcrit.
La structure d’un gène typique
des Eucaryotes
Un gène d’Eucaryote et les éléments d’ADN (segments) qui
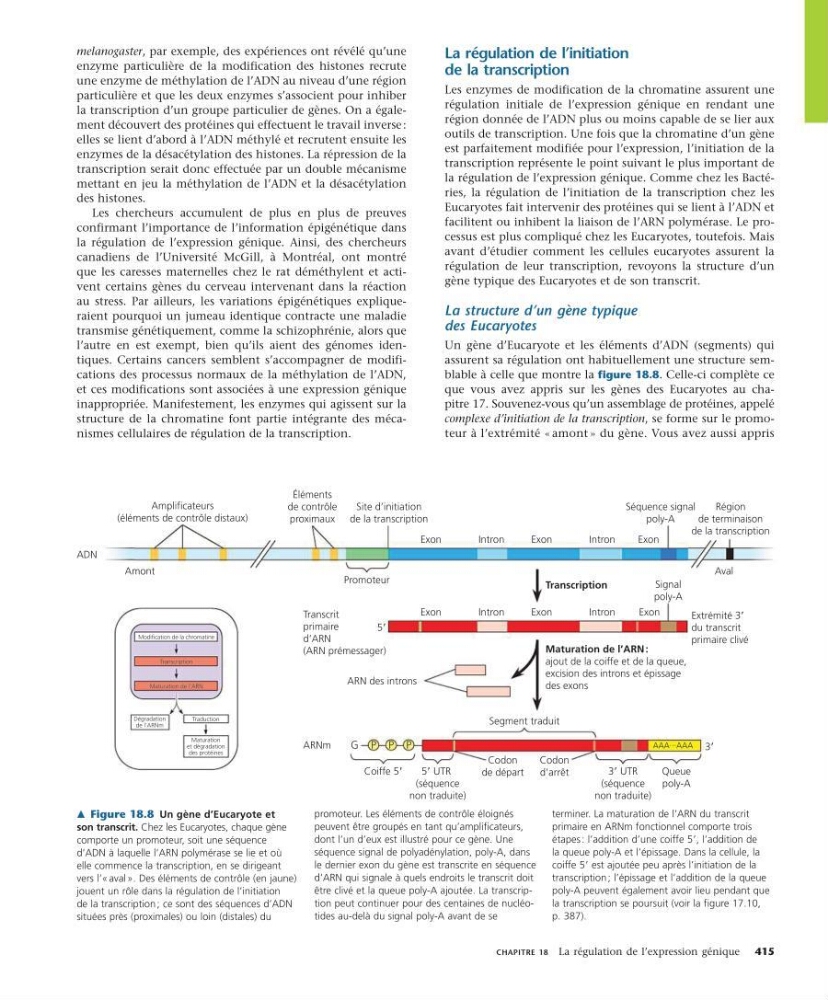
assurent sa régulation ont habituellement une structure semblable à celle que montre la figure 18.8. Celle-ci complète ce
que vous avez appris sur les gènes des Eucaryotes au chapitre 17. Souvenez-vous qu’un assemblage de protéines, appelé
complexe d’initiation de la transcription, se forme sur le promoteur à l’extrémité « amont » du gène. Vous avez aussi appris
G
Segment traduit
5 UTR
(séquence
non traduite)
Promoteur
Coiffe 5
Codon
d’arrêt
3 UTR
(séquence
non traduite)
AAA ... AAA
Queue
poly-A
Codon
de départ
Maturation de l’ARN :
ajout de la coiffe et de la queue,
excision des introns et épissage
des exons
Transcription
5
Extrémité 3
du transcrit
primaire clivé
3
Aval
Amont
Exon
Exon
Intron
Exon
Intron
Séquence signal
poly-A
Exon
Exon
Intron
Exon
Intron
Signal
poly-A
Région
de terminaison
de la transcription
Site d’initiation
de la transcription
Éléments
de contrôle
proximaux
Amplificateurs
(éléments de contrôle distaux)
ADN
ARNm
Transcrit
primaire
d’ARN
(ARN prémessager)
ARN des introns
P P P
Modification de la chromatine
Transcription
Maturation de l’ARN
Dégradation
de l’ARNm
Traduction
Maturation
et dégradation
des protéines
m Figure 18.8 Un gène d’Eucaryote et
son transcrit. Chez les Eucaryotes, chaque gène
comporte un promoteur, soit une séquence
d’ADN à laquelle l’ARN polymérase se lie et où
elle commence la transcription, en se dirigeant
vers l’« aval ». Des éléments de contrôle (en jaune)
jouent un rôle dans la régulation de l’initiation
de la transcription ; ce sont des séquences d’ADN
situées près (proximales) ou loin (distales) du
promoteur. Les éléments de contrôle éloignés
peuvent être groupés en tant qu’amplificateurs,
dont l’un d’eux est illustré pour ce gène. Une
séquence signal de polyadénylation, poly-A, dans
le dernier exon du gène est transcrite en séquence
d’ARN qui signale à quels endroits le transcrit doit
être clivé et la queue poly-A ajoutée. La transcription peut continuer pour des centaines de nucléotides au-delà du signal poly-A avant de se
terminer. La maturation de l’ARN du transcrit
primaire en ARNm fonctionnel comporte trois
étapes : l’addition d’une coiffe 59, l’addition de
la queue poly-A et l’épissage. Dans la cellule, la
coiffe 59 est ajoutée peu après l’initiation de la
transcription ; l’épissage et l’addition de la queue
poly-A peuvent également avoir lieu pendant que
la transcription se poursuit (voir la figure 17.10,
p. 387).