

416 trOiSiÈMe partie La génétique
que l’une de ces protéines, l’ARN polymérase II, transcrit le
gène ; elle synthétise un transcrit primaire (ARN prémessager). La maturation de l’ARN comprend l’addition enzymatique d’une coiffe 59 et d’une queue poly-A ; les introns sont
également enlevés du transcrit primaire pour donner un
ARNm mature. Un nombre élevé d’éléments de contrôle
sont associés à la plupart des gènes des Eucaryotes. Ce sont
tout simplement des segments d’ADN non codants qui servent
de sites de liaison pour les protéines appelées facteurs de
transcription qui contribuent elles aussi à réguler la transcription. Ces éléments de contrôle et les facteurs de transcription
qu’ils retiennent sont importants, car une régulation précise
de l’expression génique qu’on observe dans différents types de
cellules ne pourrait se dérouler sans eux.
Les rôles des facteurs de transcription
Chez les Eucaryotes, la transcription d’un gène ne peut être
effectuée par l’ARN polymérase seule. Elle nécessite la présence de facteurs de transcription. Certains d’entre eux,
comme ceux de la figure 17.8, (p. 385), sont essentiels à la
transcription de tous les gènes codant pour des protéines ; on
les appelle donc souvent facteurs de transcription généraux.
Seuls quelques facteurs de transcription généraux se lient
indépendamment à une séquence d’ADN, comme la boîte
TATA, située à l’intérieur du promoteur. Les autres s’unissent
avant tout aux protéines, y compris les autres facteurs de
transcription et l’ARN polymérase II. Les interactions protéineprotéine sont essentielles à l’initiation de la transcription
chez les Eucaryotes. Ce n’est que lorsque le complexe d’initiation est entièrement assemblé que l’ARN polymérase commence à se déplacer le long du brin d’ADN servant de matrice
et à produire un brin d’ARN complémentaire.
L’interaction entre les facteurs de transcription généraux,
l’ARN polymérase II et le promoteur aboutit habituellement à
un taux d’initiation peu élevé et à la formation d’un petit
nombre de transcrits d’ARN. Pour que la transcription de
gènes particuliers au moment et à l’endroit voulus atteigne
un niveau élevé chez les Eucaryotes, il doit se produire des
interactions entre des éléments de contrôle et d’autres protéines. On considère ces éléments comme des facteurs de
transcription spécifiques.
Les amplificateurs et les facteurs de transcription spécifiques
Comme on le voit à la figure 18.8, des éléments de contrôle
(ou éléments régulateurs), appelés éléments de contrôle proximaux, se trouvent près du promoteur. (Contrairement à certains
biologistes, nous ne les englobons pas dans le promo teur.)
Quant aux éléments plus éloignés, les éléments de contrôle distaux, ils sont appelés amplificateurs. Ils peuvent être situés
à des milliers de nucléotides de distance (jusqu’à 100 000)
en aval ou en amont d’un gène, ou à l’intérieur d’un intron.
Un gène donné peut posséder de multiples amplificateurs,
chacun étant actif à un moment donné ou dans un type de
cellule ou un emplacement différents dans l’organisme. Cependant, chaque amplificateur est généralement associé à ce
gène, et à aucun autre.
Chez les Eucaryotes, la vitesse de l’expression génique peut
être fortement augmentée ou diminuée quand des facteurs de
transcription spécifiques, soit des activateurs, soit des répresseurs, se lient aux éléments de contrôle des amplificateurs. On
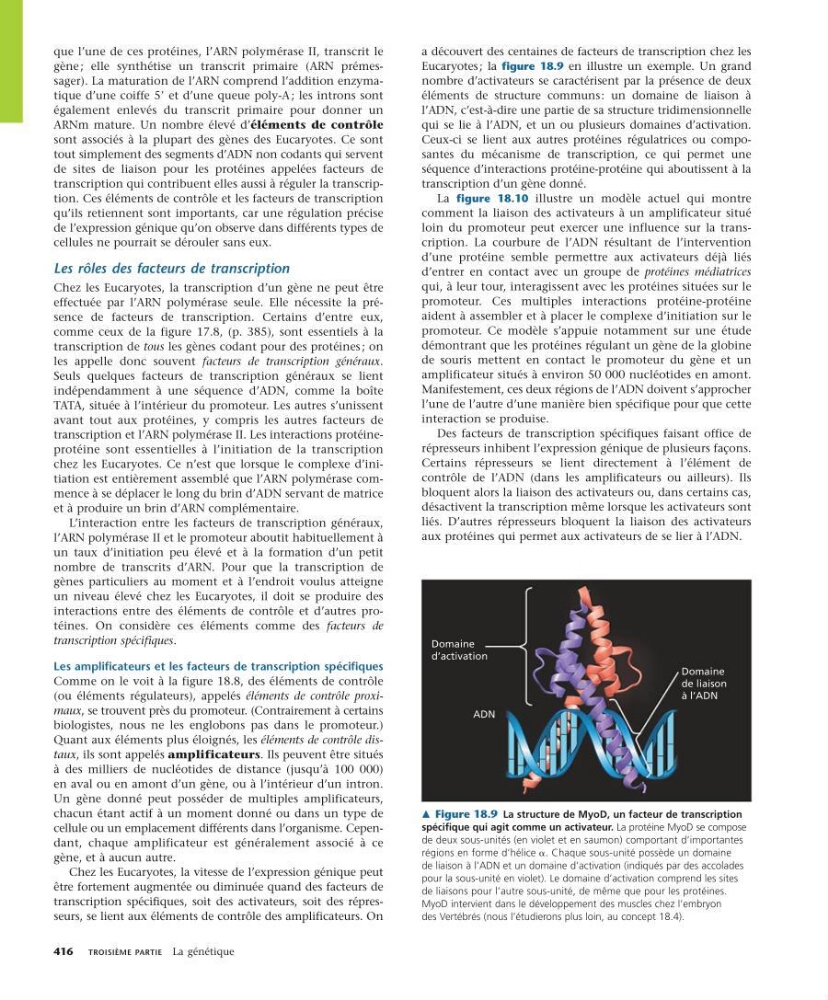
a découvert des centaines de facteurs de transcription chez les
Eucaryotes ; la figure 18.9 en illustre un exemple. Un grand
nombre d’activateurs se caractérisent par la présence de deux
éléments de structure communs : un domaine de liaison à
l’ADN, c’est-à-dire une partie de sa structure tridimensionnelle
qui se lie à l’ADN, et un ou plusieurs domaines d’activation.
Ceux-ci se lient aux autres protéines régulatrices ou composantes du mécanisme de transcription, ce qui permet une
séquence d’interactions protéine-protéine qui aboutissent à la
transcription d’un gène donné.
La figure 18.10 illustre un modèle actuel qui montre
comment la liaison des activateurs à un amplificateur situé
loin du promoteur peut exercer une influence sur la transcription. La courbure de l’ADN résultant de l’intervention
d’une protéine semble permettre aux activateurs déjà liés
d’entrer en contact avec un groupe de protéines médiatrices
qui, à leur tour, interagissent avec les protéines situées sur le
promoteur. Ces multiples interactions protéine-protéine
aident à assembler et à placer le complexe d’initiation sur le
promoteur. Ce modèle s’appuie notamment sur une étude
démontrant que les protéines régulant un gène de la globine
de souris mettent en contact le promoteur du gène et un
amplificateur situés à environ 50 000 nucléotides en amont.
Manifestement, ces deux régions de l’ADN doivent s’approcher
l’une de l’autre d’une manière bien spécifique pour que cette
interaction se produise.
Des facteurs de transcription spécifiques faisant office de
répresseurs inhibent l’expression génique de plusieurs façons.
Certains répresseurs se lient directement à l’élément de
contrôle de l’ADN (dans les amplificateurs ou ailleurs). Ils
bloquent alors la liaison des activateurs ou, dans certains cas,
désactivent la transcription même lorsque les activateurs sont
liés. D’autres répresseurs bloquent la liaison des activateurs
aux protéines qui permet aux activateurs de se lier à l’ADN.
Domaine
d’activation
ADN
Domaine
de liaison
à l’ADN
m Figure 18.9 La structure de MyoD, un facteur de transcription
spécifique qui agit comme un activateur. La protéine MyoD se compose
de deux sous-unités (en violet et en saumon) comportant d’importantes
régions en forme d’hélice a. Chaque sous-unité possède un domaine
de liaison à l’ADN et un domaine d’activation (indiqués par des accolades
pour la sous-unité en violet). Le domaine d’activation comprend les sites
de liaisons pour l’autre sous-unité, de même que pour les protéines.
MyoD intervient dans le développement des muscles chez l’embryon
des Vertébrés (nous l’étudierons plus loin, au concept 18.4).