

414 trOiSiÈMe partie La génétique
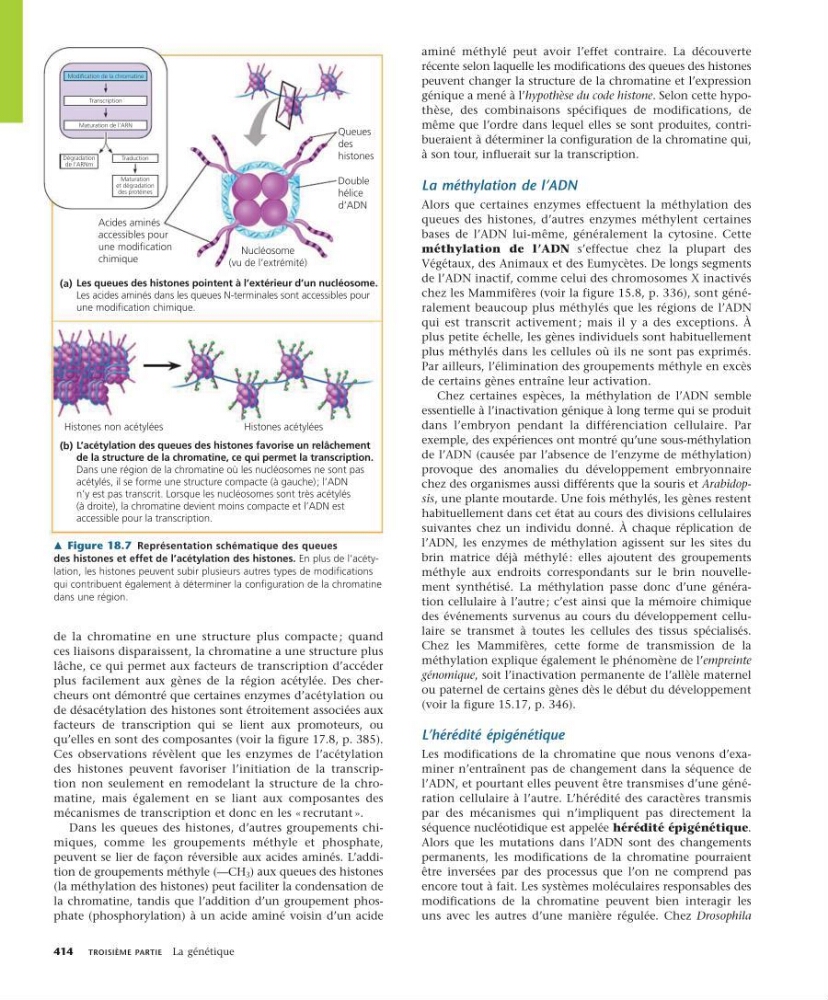
de la chromatine en une structure plus compacte ; quand
ces liaisons disparaissent, la chromatine a une structure plus
lâche, ce qui permet aux facteurs de transcription d’accéder
plus facilement aux gènes de la région acétylée. Des chercheurs ont démontré que certaines enzymes d’acétylation ou
de désacétylation des histones sont étroi tement associées aux
facteurs de transcription qui se lient aux promoteurs, ou
qu’elles en sont des compo santes (voir la figure 17.8, p. 385).
Ces observations révèlent que les enzymes de l’acétylation
des histones peuvent favoriser l’initiation de la transcription non seulement en remodelant la structure de la chromatine, mais également en se liant aux composantes des
mécanismes de transcription et donc en les « recrutant ».
Dans les queues des histones, d’autres groupements chimiques, comme les groupements méthyle et phosphate,
peuvent se lier de façon réversible aux acides aminés. L’addition de groupements méthyle (—CH 3 ) aux queues des histones
(la méthylation des histones) peut faciliter la condensation de
la chromatine, tandis que l’addition d’un groupement phosphate (phosphorylation) à un acide aminé voisin d’un acide
aminé méthylé peut avoir l’effet contraire. La découverte
récente selon laquelle les modifications des queues des histones
peuvent changer la structure de la chromatine et l’expression
génique a mené à l’hypothèse du code histone. Selon cette hypothèse, des combinaisons spécifiques de modifications, de
même que l’ordre dans lequel elles se sont produites, contribueraient à déterminer la configuration de la chromatine qui,
à son tour, influerait sur la transcription.
La méthylation de l’ADN
Alors que certaines enzymes effectuent la méthylation des
queues des histones, d’autres enzymes méthylent certaines
bases de l’ADN lui-même, généralement la cytosine. Cette
méthylation de l’ADN s’effectue chez la plupart des
Végétaux, des Animaux et des Eumycètes. De longs segments
de l’ADN inactif, comme celui des chromosomes X inactivés
chez les Mammifères (voir la figure 15.8, p. 336), sont généralement beaucoup plus méthylés que les régions de l’ADN
qui est transcrit activement ; mais il y a des exceptions. À
plus petite échelle, les gènes individuels sont habituellement
plus méthylés dans les cellules où ils ne sont pas exprimés.
Par ailleurs, l’élimination des groupements méthyle en excès
de certains gènes entraîne leur activation.
Chez certaines espèces, la méthylation de l’ADN semble
essentielle à l’inactivation génique à long terme qui se produit
dans l’embryon pendant la différenciation cellulaire. Par
exemple, des expériences ont montré qu’une sous-méthylation
de l’ADN (causée par l’absence de l’enzyme de méthylation)
provoque des anomalies du développement embryonnaire
chez des organismes aussi différents que la souris et Arabidopsis, une plante moutarde. Une fois méthylés, les gènes restent
habituellement dans cet état au cours des divisions cellulaires
suivantes chez un individu donné. À chaque réplication de
l’ADN, les enzymes de méthylation agissent sur les sites du
brin matrice déjà méthylé : elles ajoutent des groupements
méthyle aux endroits correspondants sur le brin nouvellement synthétisé. La méthylation passe donc d’une génération cellulaire à l’autre ; c’est ainsi que la mémoire chimique
des événements survenus au cours du développement cellulaire se transmet à toutes les cellules des tissus spécialisés.
Chez les Mammifères, cette forme de transmission de la
méthylation explique également le phénomène de l’empreinte
génomique, soit l’inactivation permanente de l’allèle maternel
ou paternel de certains gènes dès le début du développement
(voir la figure 15.17, p. 346).
L’hérédité épigénétique
Les modifications de la chromatine que nous venons d’examiner n’entraînent pas de changement dans la séquence de
l’ADN, et pourtant elles peuvent être transmises d’une génération cellulaire à l’autre. L’hérédité des caractères transmis
par des mécanismes qui n’impliquent pas directement la
séquence nucléotidique est appelée hérédité épigénétique.
Alors que les mutations dans l’ADN sont des changements
permanents, les modifications de la chromatine pourraient
être inversées par des processus que l’on ne comprend pas
encore tout à fait. Les systèmes moléculaires responsables des
modifications de la chromatine peuvent bien interagir les
uns avec les autres d’une manière régulée. Chez Drosophila
Queues
des
histones
Double
hélice
d’ADN
Histones non acétylées
Histones acétylées
Acides aminés
accessibles pour
une modification
chimique
Nucléosome
(vu de l’extrémité)
(a) Les queues des histones pointent à l’extérieur d’un nucléosome.
Les acides aminés dans les queues N-terminales sont accessibles pour
une modification chimique.
(b) L’acétylation des queues des histones favorise un relâchement
de la structure de la chromatine, ce qui permet la transcription.
Dans une région de la chromatine où les nucléosomes ne sont pas
acétylés, il se forme une structure compacte (à gauche); l’ADN
n’y est pas transcrit. Lorsque les nucléosomes sont très acétylés
(à droite), la chromatine devient moins compacte et l’ADN est
accessible pour la transcription.
Modification de la chromatine
Transcription
Maturation de l’ARN
Dégradation
de l’ARNm
Traduction
Maturation
et dégradation
des protéines
m Figure 18.7 Représentation schématique des queues
des his tones et effet de l’acétylation des histones. En plus de l’acétylation, les histones peuvent subir plusieurs autres types de modifications
qui contribuent également à déterminer la configuration de la chromatine
dans une région.