

chapitre 9 La respiration cellulaire et la fermentation 197
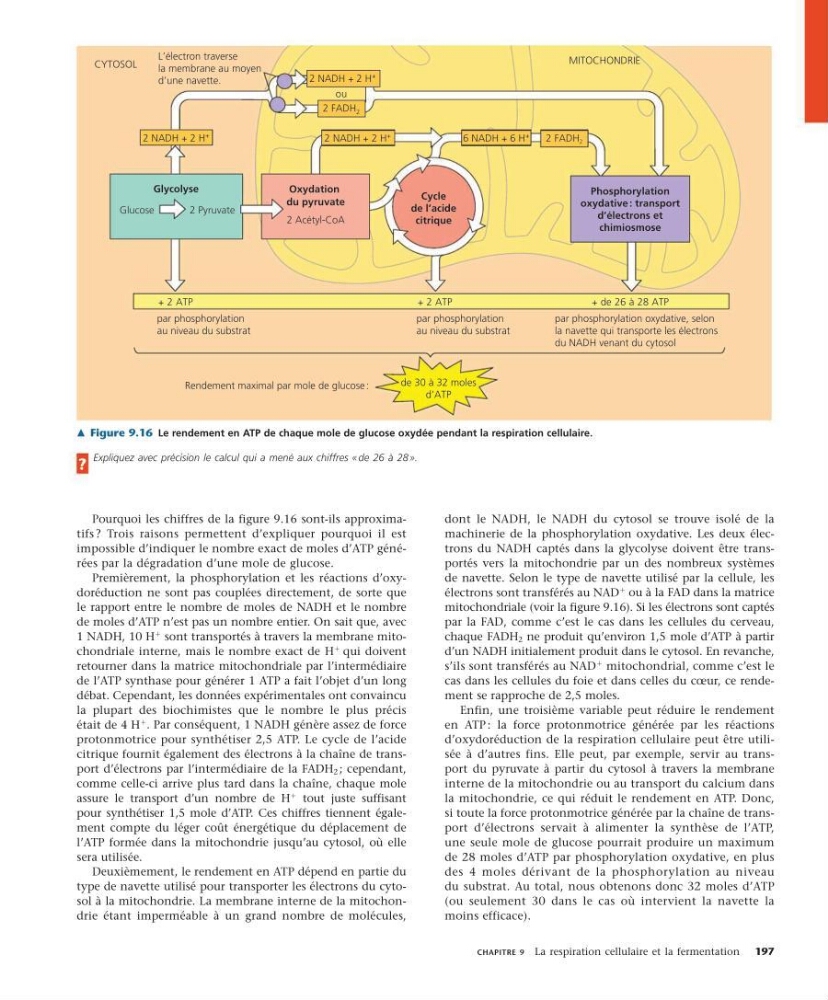
Pourquoi les chiffres de la figure 9.16 sont-ils approximatifs ? Trois raisons permettent d’expliquer pourquoi il est
impossible d’indiquer le nombre exact de moles d’ATP générées par la dégradation d’une mole de glucose.
Premièrement, la phosphorylation et les réactions d’oxydoréduction ne sont pas couplées directement, de sorte que
le rapport entre le nombre de moles de NADH et le nombre
de moles d’ATP n’est pas un nombre entier. On sait que, avec
1 NADH, 10 H
1
sont transportés à travers la membrane mitochondriale interne, mais le nombre exact de H
1
qui doivent
retourner dans la matrice mitochondriale par l’intermédiaire
de l’ATP synthase pour générer 1 ATP a fait l’objet d’un long
débat. Cependant, les données expérimentales ont convaincu
la plupart des biochimistes que le nombre le plus précis
était de 4 H
1
. Par conséquent, 1 NADH génère assez de force
protonmotrice pour synthétiser 2,5 ATP. Le cycle de l’acide
citrique fournit également des électrons à la chaîne de transport d’électrons par l’intermédiaire de la FADH 2 ; cependant,
comme celle-ci arrive plus tard dans la chaîne, chaque mole
assure le transport d’un nombre de H
1
tout juste suffisant
pour synthétiser 1,5 mole d’ATP. Ces chiffres tiennent également compte du léger coût énergétique du déplacement de
l’ATP formée dans la mitochondrie jusqu’au cytosol, où elle
sera utilisée.
Deuxièmement, le rendement en ATP dépend en partie du
type de navette utilisé pour transporter les électrons du cytosol à la mitochondrie. La membrane interne de la mitochondrie étant imperméable à un grand nombre de molécules,
dont le NADH, le NADH du cytosol se trouve isolé de la
machinerie de la phosphorylation oxydative. Les deux électrons du NADH captés dans la glycolyse doivent être transportés vers la mitochondrie par un des nombreux systèmes
de navette. Selon le type de navette utilisé par la cellule, les
électrons sont transférés au NAD
1
ou à la FAD dans la matrice
mitochondriale (voir la figure 9.16). Si les électrons sont captés
par la FAD, comme c’est le cas dans les cellules du cerveau,
chaque FADH 2 ne produit qu’environ 1,5 mole d’ATP à partir
d’un NADH initialement produit dans le cytosol. En revanche,
s’ils sont transférés au NAD
1
mitochondrial, comme c’est le
cas dans les cellules du foie et dans celles du cœur, ce rendement se rapproche de 2,5 moles.
Enfin, une troisième variable peut réduire le rendement
en ATP : la force protonmotrice générée par les réactions
d’oxydoréduction de la respiration cellulaire peut être utilisée à d’autres fins. Elle peut, par exemple, servir au transport du pyruvate à partir du cytosol à travers la membrane
interne de la mitochondrie ou au transport du calcium dans
la mitochondrie, ce qui réduit le rendement en ATP. Donc,
si toute la force protonmotrice générée par la chaîne de transport d’électrons servait à alimenter la synthèse de l’ATP,
une seule mole de glucose pourrait produire un maximum
de 28 moles d’ATP par phosphorylation oxydative, en plus
des 4 moles dérivant de la phosphorylation au niveau
du substrat. Au total, nous obtenons donc 32 moles d’ATP
(ou seulement 30 dans le cas où intervient la navette la
moins efficace).
m Figure 9.16 Le rendement en ATP de chaque mole de glucose oxydée pendant la respiration cellulaire.
Expliquez avec précision le calcul qui a mené aux chiffres « de 26 à 28 ».
?
de 30 à 32 moles
d’ATP
par phosphorylation
au niveau du substrat
2 ATP
par phosphorylation
au niveau du substrat
de 26 à 28 ATP
par phosphorylation oxydative, selon
la navette qui transporte les électrons
du NADH venant du cytosol
CYTOSOL
MITOCHONDRIE
L’électron traverse
la membrane au moyen
d’une navette.
Rendement maximal par mole de glucose :
2 ATP
Cycle
de l’acide
citrique
Glycolyse
Glucose
2 Pyruvate
2 NADH 2 H
6 NADH 6 H
2 FADH 2
2 FADH 2
2 NADH 2 H
ou
2 NADH 2 H
Phosphorylation
oxydative : transport
d’électrons et
chimiosmose
Oxydation
du pyruvate
2 Acétyl-CoA