

chapitre 9 La respiration cellulaire et la fermentation 195
En étudiant la structure de l’ATP synthase, les scientifiques
ont découvert comment la circulation des H
+
alimente la synthèse de l’ATP au moyen de cette enzyme plutôt volumineuse.
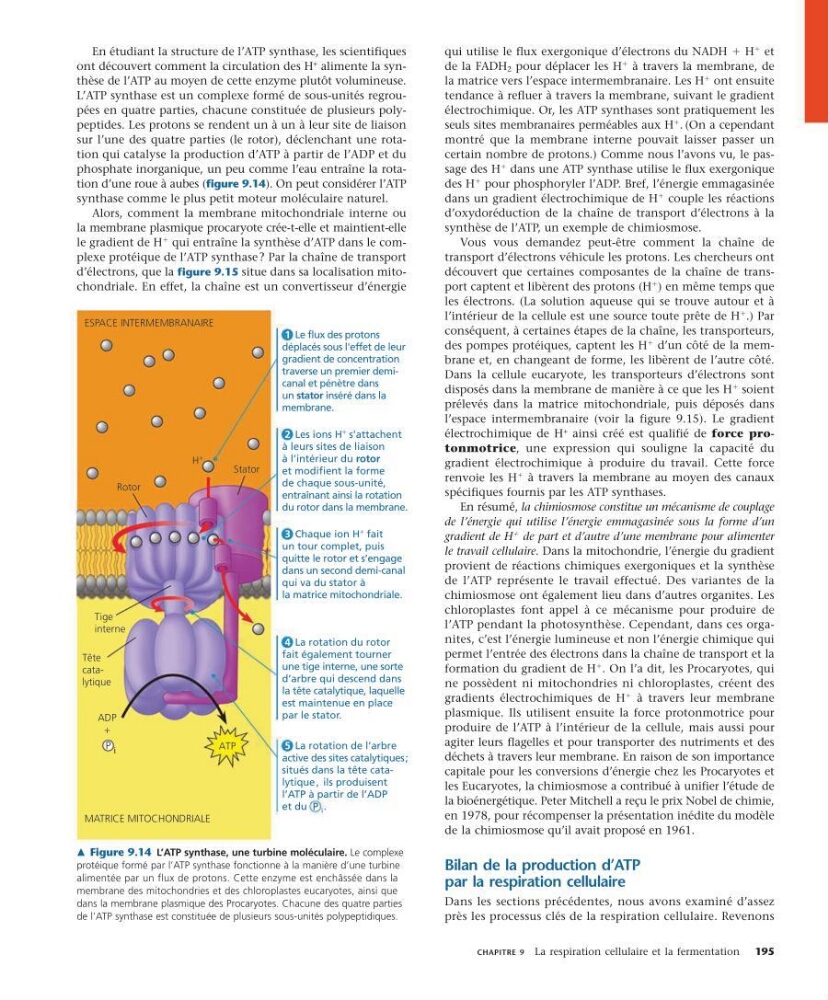
L’ATP synthase est un complexe formé de sous-unités regroupées en quatre parties, chacune constituée de plusieurs polypeptides. Les protons se rendent un à un à leur site de liaison
sur l’une des quatre parties (le rotor), déclenchant une rotation qui catalyse la production d’ATP à partir de l’ADP et du
phosphate inorganique, un peu comme l’eau entraîne la rotation d’une roue à aubes (figure 9.14). On peut considérer l’ATP
synthase comme le plus petit moteur moléculaire naturel.
Alors, comment la membrane mitochondriale interne ou
la membrane plasmique procaryote crée-t-elle et maintient-elle
le gradient de H
1
qui entraîne la synthèse d’ATP dans le complexe protéique de l’ATP synthase ? Par la chaîne de transport
d’électrons, que la figure 9.15 situe dans sa localisation mitochondriale. En effet, la chaîne est un convertisseur d’énergie
qui utilise le flux exergonique d’électrons du NADH 1 H
1
et
de la FADH 2 pour déplacer les H
1
à travers la membrane, de
la matrice vers l’espace intermembranaire. Les H
1
ont ensuite
tendance à refluer à travers la membrane, suivant le gradient
électrochimique. Or, les ATP synthases sont pratiquement les
seuls sites membranaires perméables aux H
1
. (On a cependant
montré que la membrane interne pouvait laisser passer un
certain nombre de protons.) Comme nous l’avons vu, le passage des H
1
dans une ATP synthase utilise le flux exergonique
des H
1
pour phosphoryler l’ADP. Bref, l’énergie emmagasinée
dans un gradient électrochimique de H
1
couple les réactions
d’oxydoréduction de la chaîne de transport d’électrons à la
synthèse de l’ATP, un exemple de chimiosmose.
Vous vous demandez peut-être comment la chaîne de
transport d’électrons véhicule les protons. Les chercheurs ont
découvert que certaines composantes de la chaîne de transport captent et libèrent des protons (H
1
) en même temps que
les électrons. (La solution aqueuse qui se trouve autour et à
l’intérieur de la cellule est une source toute prête de H
1
.) Par
conséquent, à certaines étapes de la chaîne, les transporteurs,
des pompes protéiques, captent les H
1
d’un côté de la membrane et, en changeant de forme, les libèrent de l’autre côté.
Dans la cellule eucaryote, les transporteurs d’électrons sont
disposés dans la membrane de manière à ce que les H
1
soient
prélevés dans la matrice mitochondriale, puis déposés dans
l’espace intermembranaire (voir la figure 9.15). Le gradient
électrochimique de H
+
ainsi créé est qualifié de force protonmotrice, une expression qui souligne la capacité du
gradient électrochimique à produire du travail. Cette force
renvoie les H
1
à travers la membrane au moyen des canaux
spécifiques fournis par les ATP synthases.
En résumé, la chimiosmose constitue un mécanisme de couplage
de l’énergie qui utilise l’énergie emmagasinée sous la forme d’un
gradient de H
1
de part et d’autre d’une membrane pour alimenter
le travail cellulaire. Dans la mitochondrie, l’énergie du gradient
provient de réactions chimiques exergoniques et la synthèse
de l’ATP représente le travail effectué. Des variantes de la
chimiosmose ont également lieu dans d’autres organites. Les
chloroplastes font appel à ce mécanisme pour produire de
l’ATP pendant la photosynthèse. Cependant, dans ces organites, c’est l’énergie lumineuse et non l’énergie chimique qui
permet l’entrée des électrons dans la chaîne de transport et la
formation du gradient de H
1
. On l’a dit, les Procaryotes, qui
ne possèdent ni mitochondries ni chloroplastes, créent des
gradients électrochimiques de H
1
à travers leur membrane
plasmique. Ils utilisent ensuite la force protonmotrice pour
produire de l’ATP à l’intérieur de la cellule, mais aussi pour
agiter leurs flagelles et pour transporter des nutriments et des
déchets à travers leur membrane. En raison de son importance
capitale pour les conversions d’énergie chez les Procaryotes et
les Eucaryotes, la chimiosmose a contribué à unifier l’étude de
la bioénergétique. Peter Mitchell a reçu le prix Nobel de chimie,
en 1978, pour récompenser la présentation inédite du modèle
de la chimiosmose qu’il avait proposé en 1961.
Bilan de la production d’atp
par la respiration cellulaire
Dans les sections précédentes, nous avons examiné d’assez
près les processus clés de la respiration cellulaire. Revenons
m Figure 9.14 L’ATP synthase, une turbine moléculaire. Le complexe
protéique formé par l’ATP synthase fonctionne à la manière d’une turbine
alimentée par un flux de protons. Cette enzyme est enchâssée dans la
membrane des mitochondries et des chloroplastes eucaryotes, ainsi que
dans la membrane plasmique des Procaryotes. Chacune des quatre parties
de l’ATP synthase est constituée de plusieurs sous-unités polypeptidiques.
Rotor
H +
Stator
ADP
+
MATRICE MITOCHONDRIALE
ESPACE INTERMEMBRANAIRE
Tige
interne
Tête
catalytique
Les ions H + s'attachent
à leurs sites de liaison
à l’intérieur du rotor
et modifient la forme
de chaque sous-unité,
entraînant ainsi la rotation
du rotor dans la membrane.
2
Le flux des protons
déplacés sous l'effet de leur
gradient de concentration
traverse un premier demicanal et pénètre dans
un stator inséré dans la
membrane.
1
Chaque ion H + fait
un tour complet, puis
quitte le rotor et s’engage
dans un second demi-canal
qui va du stator à
la matrice mitochondriale.
3
La rotation du rotor
fait également tourner
une tige interne, une sorte
d’arbre qui descend dans
la tête catalytique, laquelle
est maintenue en place
par le stator.
4
La rotation de l’arbre
active des sites catalytiques;
situés dans la tête catalytique , ils produisent
l’ATP à partir de l’ADP
et du
.
5
ATP
P i
P i