

194 DeUXiÈMe partie La cellule
petite molécule hydrophobe, le seul élément de la chaîne qui
ne soit pas une protéine. L’ubiquinone, par suite de sa queue
hydrophobe et donc soluble dans les lipides, est mobile dans
(ou sur) la membrane ; elle ne loge pas dans un des complexes. (L’autre nom de l’ubiquinone est coenzyme Q, ou CoQ ;
on en vend comme supplément alimentaire.)
La plupart des transporteurs d’électrons entre l’ubiquinone
(Q) et le dioxygène sont des protéines appelées cytochromes
(Cyt). Leur groupement prosthétique, nommé groupement
hème, possède un atome de fer qui accepte les électrons et
les cède, un à la fois. (Il ressemble au groupement hème de
l’hémoglobine, la protéine des globules rouges des Vertébrés,
sauf que le fer de l’hémoglobine transporte du dioxygène et
non des électrons.) La chaîne de transport d’électrons comprend divers cytochromes portant tous un groupement hème
(transporteur d’électrons) légèrement différent. Le dernier
cytochrome de la chaîne, le cytochrome a 3 , cède ses électrons
au dioxygène, qui est très électronégatif. Chaque atome de
dioxygène recueille également une paire de protons dans le
milieu aqueux, ce qui forme de l’eau.
La FADH 2 , l’autre coenzyme réduite du cycle de l’acide
citrique, fournit elle aussi des électrons à la chaîne de transport.
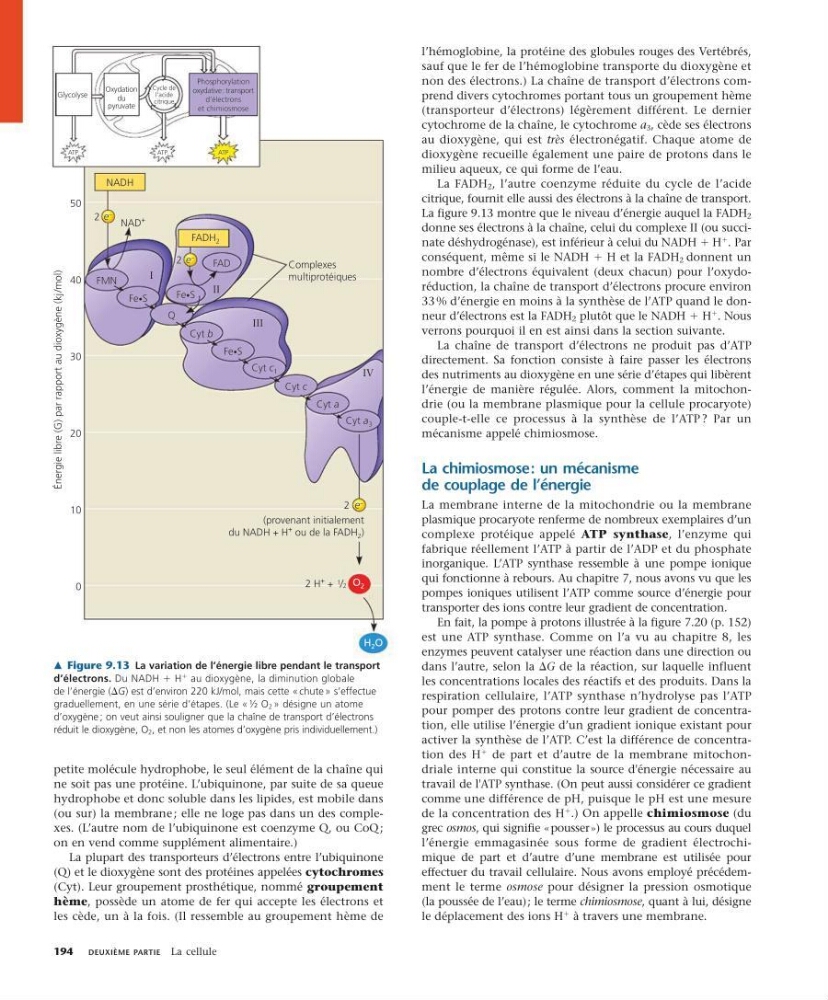
La figure 9.13 montre que le niveau d’énergie auquel la FADH 2
donne ses électrons à la chaîne, celui du complexe II (ou succinate déshydrogénase), est inférieur à celui du NADH 1 H
1
. Par
conséquent, même si le NADH 1 H et la FADH 2 donnent un
nombre d’électrons équivalent (deux chacun) pour l’oxydoréduction, la chaîne de transport d’électrons procure environ
33 % d’énergie en moins à la synthèse de l’ATP quand le donneur d’électrons est la FADH 2 plutôt que le NADH 1 H
1
. Nous
verrons pourquoi il en est ainsi dans la section suivante.
La chaîne de transport d’électrons ne produit pas d’ATP
directement. Sa fonction consiste à faire passer les électrons
des nutriments au dioxygène en une série d’étapes qui libèrent
l’énergie de manière régulée. Alors, comment la mitochondrie (ou la membrane plasmique pour la cellule procaryote)
couple-t-elle ce processus à la synthèse de l’ATP ? Par un
mécanisme appelé chimiosmose.
La chimiosmose : un mécanisme
de couplage de l’énergie
La membrane interne de la mitochondrie ou la membrane
plasmique procaryote renferme de nombreux exemplaires d’un
complexe protéique appelé ATP synthase, l’enzyme qui
fabrique réellement l’ATP à partir de l’ADP et du phosphate
inorganique. L’ATP synthase ressemble à une pompe ionique
qui fonctionne à rebours. Au chapitre 7, nous avons vu que les
pompes ioniques utilisent l’ATP comme source d’énergie pour
transporter des ions contre leur gradient de concentration.
En fait, la pompe à protons illustrée à la figure 7.20 (p. 152)
est une ATP synthase. Comme on l’a vu au chapitre 8, les
enzymes peuvent catalyser une réaction dans une direction ou
dans l’autre, selon la DG de la réaction, sur laquelle influent
les concentrations locales des réactifs et des produits. Dans la
respiration cellulaire, l’ATP synthase n’hydrolyse pas l’ATP
pour pomper des protons contre leur gradient de concentration, elle utilise l’énergie d’un gradient ionique existant pour
activer la synthèse de l’ATP. C’est la différence de concentration des H
1
de part et d’autre de la membrane mitochondriale interne qui constitue la source d'énergie nécessaire au
travail de l'ATP synthase. (On peut aussi considérer ce gradient
comme une différence de pH, puisque le pH est une mesure
de la concentration des H
1
.) On appelle chimiosmose (du
grec osmos, qui signifie « pousser ») le processus au cours duquel
l’énergie emmagasinée sous forme de gradient électro chimique de part et d’autre d’une membrane est utilisée pour
effectuer du travail cellulaire. Nous avons employé précédemment le terme osmose pour désigner la pression osmotique
(la poussée de l’eau) ; le terme chimiosmose, quant à lui, désigne
le déplacement des ions H
1
à travers une membrane.
m Figure 9.13 La variation de l’énergie libre pendant le transport
d’électrons. Du NADH 1 H
1 au dioxygène, la diminution globale
de l’énergie (DG) est d’environ 220 kJ/mol, mais cette « chute » s’effectue
graduellement, en une série d’étapes. (Le « ½ O 2 » désigne un atome
d’oxygène ; on veut ainsi souligner que la chaîne de transport d’électrons
réduit le dioxygène, O 2 , et non les atomes d’oxygène pris individuellement.)
NADH
NAD
50
40
30
20
10
0
FMN
I
II
III
IV
Fe•S
Q
Fe•S
FAD
Cyt b
Complexes
multiprotéiques
Fe•S
Cyt c 1
Cyt c
Cyt a
Cyt a 3
2 H
(provenant initialement
du NADH H
ou de la FADH 2 )
2
FADH 2
Énergie libre (G) par rapport au dioxygène (kj/mol)
H 2 O
1 2 O 2
e
<
2 e
<
2 e
<
Glycolyse
Oxydation
du
pyruvate
Cycle de
l’acide
citrique
Phosphorylation
oxydative: transport
d’électrons
et chimiosmose
ATP
ATP
ATP