

chapitre 7 Structure et fonction des membranes 141
Après avoir examiné ces faits, S. J. Singer et G. Nicolson
ont émis l’hypothèse, en 1972, que les protéines membranaires se situaient à l’intérieur de la bicouche de phosphoglycérolipides et que seules leurs parties hydrophiles en émergeaient
(figure 7.3). Un tel arrangement moléculaire maximiserait
le contact des parties hydrophiles des protéines et des phosphoglycérolipides avec l’eau du cytosol et du liquide extracellulaire, tout en fournissant aux parties hydrophobes un
milieu non aqueux. D’après ce modèle, la membrane est
une mosaïque de molécules de protéines baignant dans une
bicouche fluide de phosphoglycérolipides.
Une technique de préparation des cellules, le cryodécapage,
a fini par convaincre les chercheurs que les protéines se trouvaient bel et bien insérées dans la bicouche de phosphoglycérolipides (figure 7.4). Le cryodécapage sépare la double couche
de la membrane en son milieu – un peu comme si on ouvrait
un sandwich au beurre d’arachide croquant. Lorsqu’on l’examine au microscope électronique, l’intérieur de la bicouche a
un aspect granuleux dû aux protéines qui, conformément au
modèle de la mosaïque fluide, sont éparpillées au sein d’une
matrice lisse et s’accrochent à l’une ou l’autre des couches,
comme le feraient les morceaux d’arachides du sandwich.
Puisque les modèles sont des hypothèses, le remplacement
d’un modèle de structure membranaire par un autre ne signifie pas que le précédent n’avait aucune valeur. L’acceptation
ou le rejet d’un modèle dépend de sa capacité à correspondre
aux faits observés et à expliquer les résultats expérimentaux.
De nouvelles données peuvent rendre caduc un modèle largement accepté auparavant, mais là encore il ne sera pas nécessairement abandonné tout à fait ; on pourra le réviser pour y
intégrer ces découvertes. Le modèle de la mosaïque fluide se
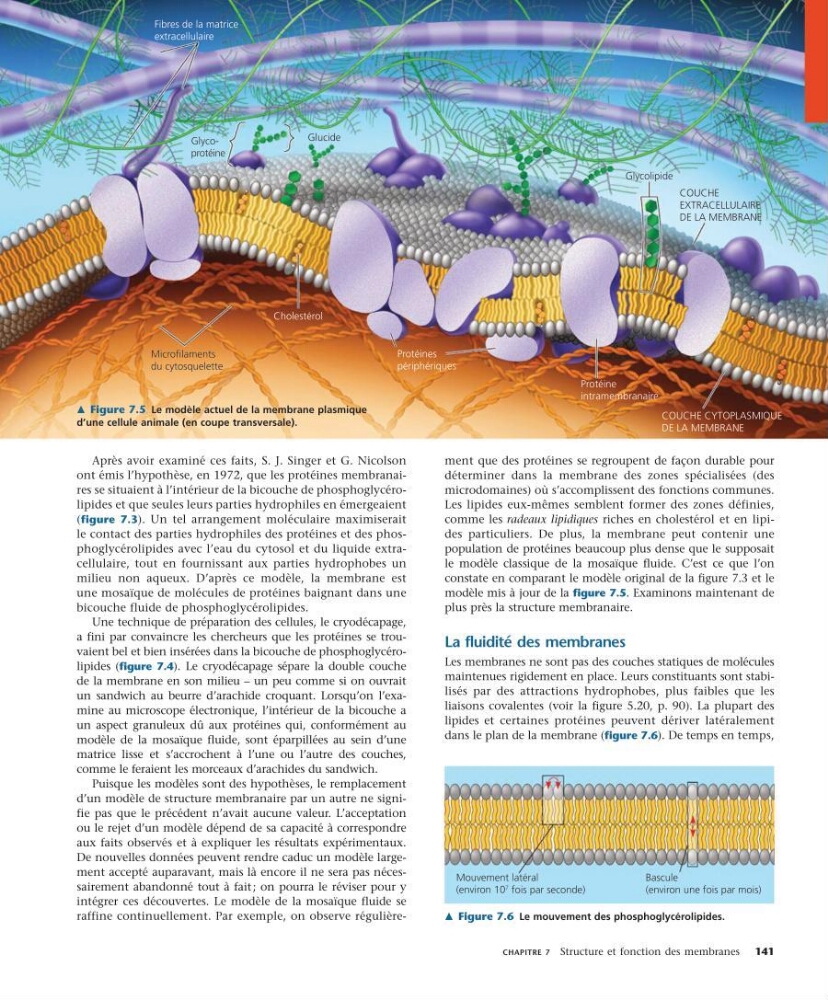
raffine continuellement. Par exemple, on observe régulièrement que des protéines se regroupent de façon durable pour
déterminer dans la membrane des zones spécialisées (des
microdomaines) où s’accomplissent des fonctions communes.
Les lipides euxmêmes semblent former des zones définies,
comme les radeaux lipidiques riches en cholestérol et en lipides particuliers. De plus, la membrane peut contenir une
population de protéines beaucoup plus dense que le supposait
le modèle classique de la mosaïque fluide. C’est ce que l’on
constate en comparant le modèle original de la figure 7.3 et le
modèle mis à jour de la figure 7.5. Examinons maintenant de
plus près la structure membranaire.
La fluidité des membranes
Les membranes ne sont pas des couches statiques de molécules
maintenues rigidement en place. Leurs constituants sont stabilisés par des attractions hydrophobes, plus faibles que les
liaisons covalentes (voir la figure 5.20, p. 90). La plupart des
lipides et certaines protéines peuvent dériver latéralement
dans le plan de la membrane (figure 7.6). De temps en temps,
Fibres de la matrice
extracellulaire
COUCHE CYTOPLASMIQUE
DE LA MEMBRANE
COUCHE
EXTRACELLULAIRE
DE LA MEMBRANE
Glycoprotéine
Glucide
Glycolipide
Protéine
intramembranaire
Microfilaments
du cytosquelette
Cholestérol
Protéines
périphériques
m Figure 7.5 Le modèle actuel de la membrane plasmique
d’une cellule animale (en coupe transversale).
m Figure 7.6 Le mouvement des phosphoglycérolipides.
Mouvement latéral
(environ 10
7 fois par seconde)
Bascule
(environ une fois par mois)