

chapitre 6 Exploration de la cellule 125
dif férente). Beaucoup d’organismes unicellulaires eucaryotes (appartenant au règne des Protistes) se propulsent dans
l’eau au moyen de cils ou de flagelles ; de même, les gamètes
mâles des Animaux (les spermatozoïdes), des Algues et de certains Végétaux sont flagellés. Mais les cils et les flagelles ne
servent pas seulement au déplacement cellulaire. Ils créent un
courant dans la mince couche de liquide qui recouvre la surface des tissus comportant des cellules ciliées ou flagellées,
lesquels ne se déplacent pas. Par exemple, les cils des cellules
qui tapissent la trachée expulsent des poumons le mucus
chargé de débris (voir la figure 6.3). De même, dans les voies
génitales de la femme, les cils recouvrant les trompes utérines
aident à propulser l’ovule vers l’utérus. Chez les Invertébrés, le
battement des cils sert à capter des particules de nourriture.
Lorsqu’une cellule est dotée de cils, ceux-ci sont généralement très abondants ; ils mesurent environ 0,25 µm de
diamètre et de 2 à 20 µm de long. Les flagelles sont moins
nombreux que les cils : une cellule n’en porte généralement
qu’un seul ou que quelques-uns. Leur diamètre est identique,
mais leur longueur va de 10 à 200 µm.
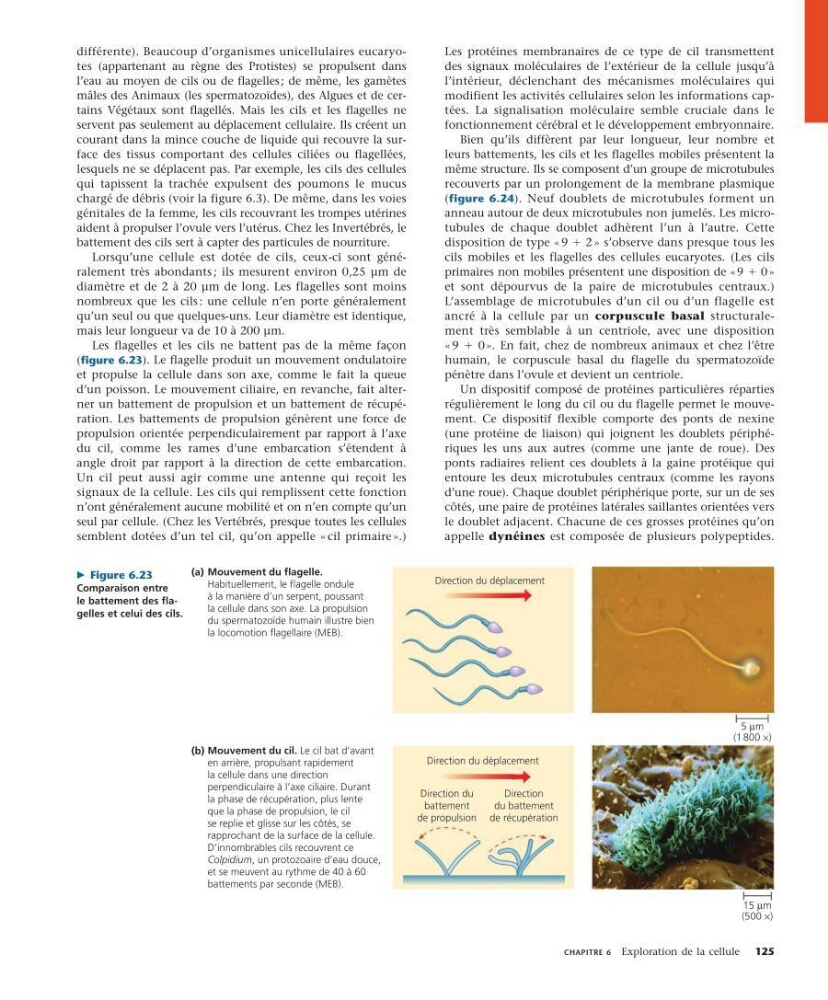
Les flagelles et les cils ne battent pas de la même façon
(figure 6.23). Le flagelle produit un mouvement ondulatoire
et propulse la cellule dans son axe, comme le fait la queue
d’un poisson. Le mouvement ciliaire, en revanche, fait alterner un battement de propulsion et un battement de récupération. Les battements de propulsion génèrent une force de
propulsion orientée perpendiculairement par rapport à l’axe
du cil, comme les rames d’une embarcation s’étendent à
angle droit par rapport à la direction de cette embarcation.
Un cil peut aussi agir comme une antenne qui reçoit les
signaux de la cellule. Les cils qui remplissent cette fonction
n’ont généralement aucune mobilité et on n’en compte qu’un
seul par cellule. (Chez les Vertébrés, presque toutes les cellules
semblent dotées d’un tel cil, qu’on appelle « cil primaire ».)
Les protéines membranaires de ce type de cil transmettent
des signaux moléculaires de l’extérieur de la cellule jusqu’à
l’intérieur, déclenchant des mécanismes moléculaires qui
modifient les activités cellulaires selon les informations captées. La signalisation moléculaire semble cruciale dans le
fonctionnement cérébral et le développement embryonnaire.
Bien qu’ils diffèrent par leur longueur, leur nombre et
leurs battements, les cils et les flagelles mobiles présentent la
même structure. Ils se composent d’un groupe de microtubules
recouverts par un prolongement de la membrane plasmique
(figure 6.24). Neuf doublets de microtubules forment un
anneau autour de deux microtubules non jumelés. Les microtubules de chaque doublet adhèrent l’un à l’autre. Cette
disposition de type « 9 2 » s’observe dans presque tous les
cils mobiles et les flagelles des cellules eucaryotes. (Les cils
primaires non mobiles présentent une disposition de « 9 0 »
et sont dépourvus de la paire de microtubules centraux.)
L’assemblage de microtubules d’un cil ou d’un flagelle est
ancré à la cellule par un corpuscule basal structuralement très semblable à un centriole, avec une disposition
« 9 0 ». En fait, chez de nombreux animaux et chez l’être
humain, le corpuscule basal du flagelle du spermatozoïde
pénètre dans l’ovule et devient un centriole.
Un dispositif composé de protéines particulières réparties
régulièrement le long du cil ou du flagelle permet le mouvement. Ce dispositif flexible comporte des ponts de nexine
(une protéine de liaison) qui joignent les doublets périphériques les uns aux autres (comme une jante de roue). Des
ponts radiaires relient ces doublets à la gaine protéique qui
entoure les deux microtubules centraux (comme les rayons
d’une roue). Chaque doublet périphérique porte, sur un de ses
côtés, une paire de protéines latérales saillantes orientées vers
le doublet adjacent. Chacune de ces grosses protéines qu’on
appelle dynéines est composée de plusieurs poly pep tides.
Direction du
battement
de propulsion
Direction
du battement
de récupération
Direction du déplacement
(a)
Direction du déplacement
15 Rm
(500 w)
Mouvement du flagelle.
Habituellement, le flagelle ondule
à la manière d’un serpent, poussant
la cellule dans son axe. La propulsion
du spermatozoïde humain illustre bien
la locomotion flagellaire (MEB).
(b) Mouvement du cil. Le cil bat d’avant
en arrière, propulsant rapidement
la cellule dans une direction
perpendiculaire à l’axe ciliaire. Durant
la phase de récupération, plus lente
que la phase de propulsion, le cil
se replie et glisse sur les côtés, se
rapprochant de la surface de la cellule.
D’innombrables cils recouvrent ce
Colpidium, un protozoaire d’eau douce,
et se meuvent au rythme de 40 à 60
battements par seconde (MEB).
5 Rm
(1 800 w)
Figure 6.23
Comparaison entre
le battement des flagelles et celui des cils.