

10 – CINÉTIQUES DES SYSTÈMES MULTI-ENZYMATIQUES
361
5
0
– 5
0
v
[ATP] (mM)
5
10
15
5
01234
0
[AMP] ou [ADP] (mM)
[ATP] (mM)
[AMP]
[ADP]
25 [AMP]
5
4
3
2
1
13 24
± 5%
± 2,8%
± 20%
Aucun effet
de l'AMP
Inhibition
par l'AMP
–0,5
0
0,5
0,1
0
0,2
a
b
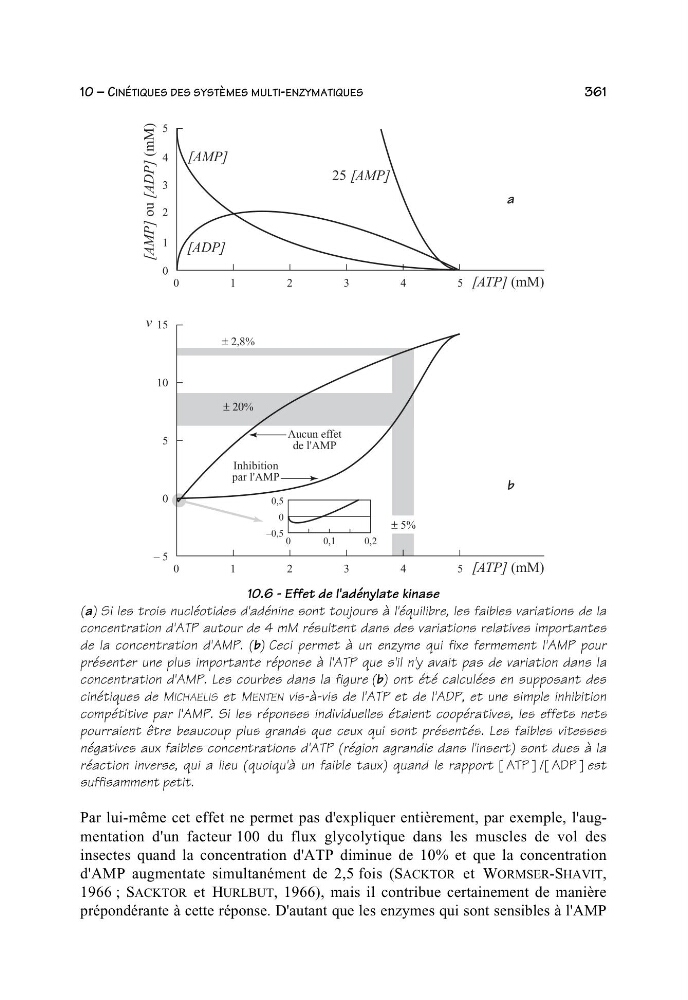
10.6 - Effet de l'adénylate kinase
(a) Si les trois nucléotides d'adénine sont toujours à l'équilibre, les faibles variations de la
concentration d'ATP autour de 4 mM résultent dans des variations relatives importantes
de la concentration d'AMP. (b) Ceci permet à un enzyme qui fixe fermement l'AMP pour
présenter une plus importante réponse à l'ATP que s'il n'y avait pas de variation dans la
concentration d'AMP. Les courbes dans la figure (b) ont été calculées en supposant des
cinétiques de MICHAELIS et MENTEN vis-à-vis de l'ATP et de l'ADP, et une simple inhibition
compétitive par l'AMP. Si les réponses individuelles étaient coopératives, les effets nets
pourraient être beaucoup plus grands que ceux qui sont présentés. Les faibles vitesses
négatives aux faibles concentrations d'ATP (région agrandie dans l'insert) sont dues à la
réaction inverse, qui a lieu (quoiqu'à un faible taux) quand le rapport [ATP]/[ADP]est
suffisamment petit.
Par lui-même cet effet ne permet pas d'expliquer entièrement, par exemple, l'augmentation d'un facteur 100 du flux glycolytique dans les muscles de vol des
insectes quand la concentration d'ATP diminue de 10% et que la concentration
d'AMP augmentate simultanément de 2,5 fois (SACKTOR et WORMSER-SHAVIT,
1966 ; SACKTOR et HURLBUT, 1966), mais il contribue certainement de manière
prépondérante à cette réponse. D'autant que les enzymes qui sont sensibles à l'AMP