

9 – CONTRÔLE DE L’ACTIVITÉ ENZYMATIQUE
299
9.2. LE DÉVELOPPEMENT DE MODÈLE
EXPLIQUANT LA COOPÉRATIVITÉ
9.2.1. L’équation de HILL
Il est souvent pratique d’exprimer le degré de coopérativité d’un enzyme en terme
de l’équation suivante :
v
VA
KA
h
hh
=
+
[]
[]
,
05
[9.3]
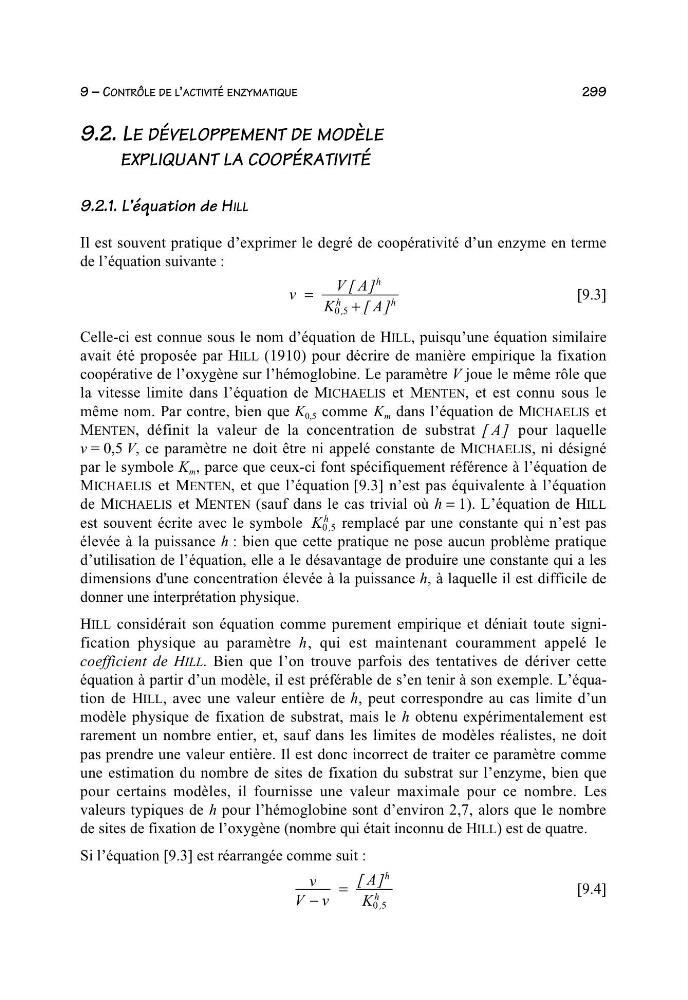
Celle-ci est connue sous le nom d’équation de HILL, puisqu’une équation similaire
avait été proposée par HILL (1910) pour décrire de manière empirique la fixation
coopérative de l’oxygène sur l’hémoglobine. Le paramètre V joue le même rôle que
la vitesse limite dans l’équation de MICHAELIS et MENTEN, et est connu sous le
même nom. Par contre, bien que K 0,5 comme K m dans l’équation de MICHAELIS et
MENTEN, définit la valeur de la concentration de substrat [] A pour laquelle
v = 0,5 V, ce paramètre ne doit être ni appelé constante de MICHAELIS, ni désigné
par le symbole K m , parce que ceux-ci font spécifiquement référence à l’équation de
MICHAELIS et MENTEN, et que l’équation [9.3] n’est pas équivalente à l’équation
de MICHAELIS et MENTEN (sauf dans le cas trivial où h = 1). L’équation de HILL
est souvent écrite avec le symbole K
h
05 , remplacé par une constante qui n’est pas
élevée à la puissance h : bien que cette pratique ne pose aucun problème pratique
d’utilisation de l’équation, elle a le désavantage de produire une constante qui a les
dimensions d'une concentration élevée à la puissance h, à laquelle il est difficile de
donner une interprétation physique.
HILL considérait son équation comme purement empirique et déniait toute signification physique au paramètre h, qui est maintenant couramment appelé le
coefficient de HILL. Bien que l’on trouve parfois des tentatives de dériver cette
équation à partir d’un modèle, il est préférable de s’en tenir à son exemple. L’équation de HILL, avec une valeur entière de h, peut correspondre au cas limite d’un
modèle physique de fixation de substrat, mais le h obtenu expérimentalement est
rarement un nombre entier, et, sauf dans les limites de modèles réalistes, ne doit
pas prendre une valeur entière. Il est donc incorrect de traiter ce paramètre comme
une estimation du nombre de sites de fixation du substrat sur l’enzyme, bien que
pour certains modèles, il fournisse une valeur maximale pour ce nombre. Les
valeurs typiques de h pour l’hémoglobine sont d’environ 2,7, alors que le nombre
de sites de fixation de l’oxygène (nombre qui était inconnu de HILL) est de quatre.
Si l’équation [9.3] est réarrangée comme suit :
v
Vv
A
K
h
h
−
=
[]
,
05
[9.4]