

8 – EFFETS DE L’ENVIRONNEMENT SUR LES ENZYMES
273
8.3. L’EFFET DU PH SUR LES CONSTANTES
CINÉTIQUES ENZYMATIQUES
8.3.1. Hypothèses sous-jacentes
Les courbes d’activité en cloche qui sont souvent observées pour les paramètres
enzymatiques V et VK m peuvent être expliquées par une simple extension de la
théorie de l’ionisation d’un acide dibasique (le traitement du K m est plus com
plexe, comme nous le verrons). Le mécanisme fondamental est présenté dans la
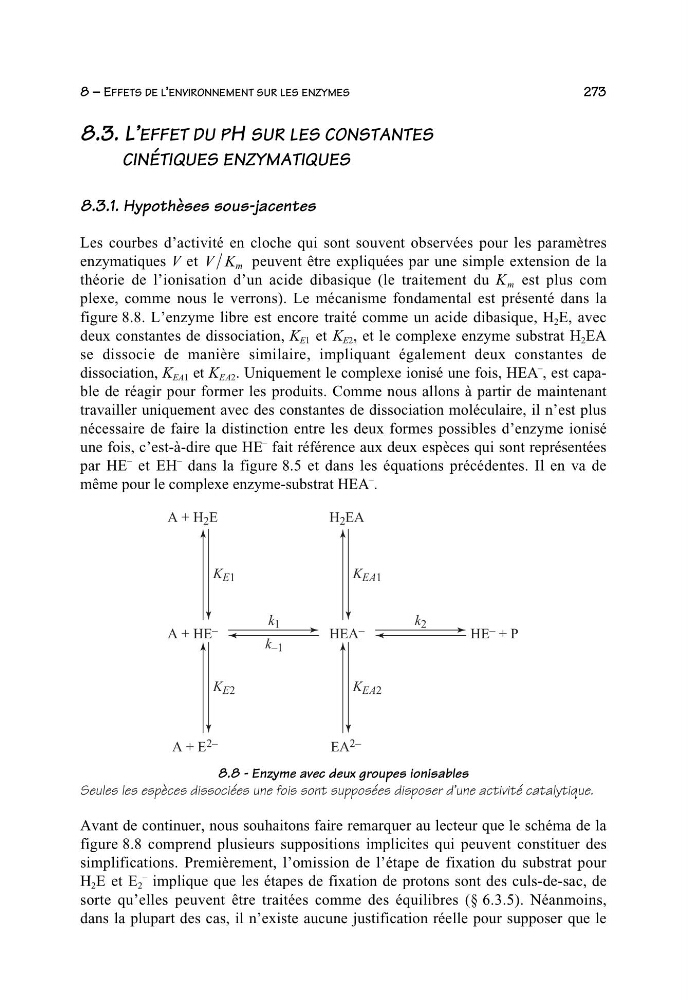
figure 8.8. L’enzyme libre est encore traité comme un acide dibasique, H 2 E, avec
deux constantes de dissociation, K E1 et K E2 , et le complexe enzyme substrat H 2 EA
se dissocie de manière similaire, impliquant également deux constantes de
dissociation, K EA1 et K EA2 . Uniquement le complexe ionisé une fois, HEA
– , est capable de réagir pour former les produits. Comme nous allons à partir de maintenant
travailler uniquement avec des constantes de dissociation moléculaire, il n’est plus
nécessaire de faire la distinction entre les deux formes possibles d’enzyme ionisé
une fois, c’est-à-dire que HE
– fait référence aux deux espèces qui sont représentées
par HE
– et EH
– dans la figure 8.5 et dans les équations précédentes. Il en va de
même pour le complexe enzyme-substrat HEA
– .
A + H 2 E
k –1
k 1
k 2
K E1
K EA1
K EA2
K E2
H 2 EA
A + HE –
HE – + P
HEA –
A + E 2–
EA 2–
8.8 - Enzyme avec deux groupes ionisables
Seules les espèces dissociées une fois sont supposées disposer d’une activité catalytique.
Avant de continuer, nous souhaitons faire remarquer au lecteur que le schéma de la
figure 8.8 comprend plusieurs suppositions implicites qui peuvent constituer des
simplifications. Premièrement, l’omission de l’étape de fixation du substrat pour
H 2 E et E 2
– implique que les étapes de fixation de protons sont des culs-de-sac, de
sorte qu’elles peuvent être traitées comme des équilibres (§ 6.3.5). Néanmoins,
dans la plupart des cas, il n’existe aucune justification réelle pour supposer que le