

7 – UTILISATION D'ISOTOPES POUR L'ÉTUDE DES MÉCANISMES ENZYMATIQUES
249
[7.15]
Toutefois, la « technique ordinaire » en question est l'inhibition par le produit, qui,
comme nous l'avons mentionné plus haut, est impossible dans des conditions
d'irréversibilité de la réaction avec un enzyme à un seul produit. Le problème
semble toujours être accessible à l'analyse par des techniques ordinaires si nous
mesurons la vitesse en variant [] A et [] P dans un rapport constant, comme par
exemple en fixant [] []
Pr A
=
ou r est une constante, car dans ce cas l'équation de
vitesse prend une forme simple avec un seul terme au numérateur :
v
kk k k k k r E
A
kkkk
k kk
kk k r Ak k r A
=
−
++
+
+
+
+
[
] +
−− −
−−
−
−
−
−
() [ ] [ ]
(
) (
)
(
)(
)
[]
[]
123
1 2 3
0
12
33
1
23
1
32
1
2
2
[7.16]
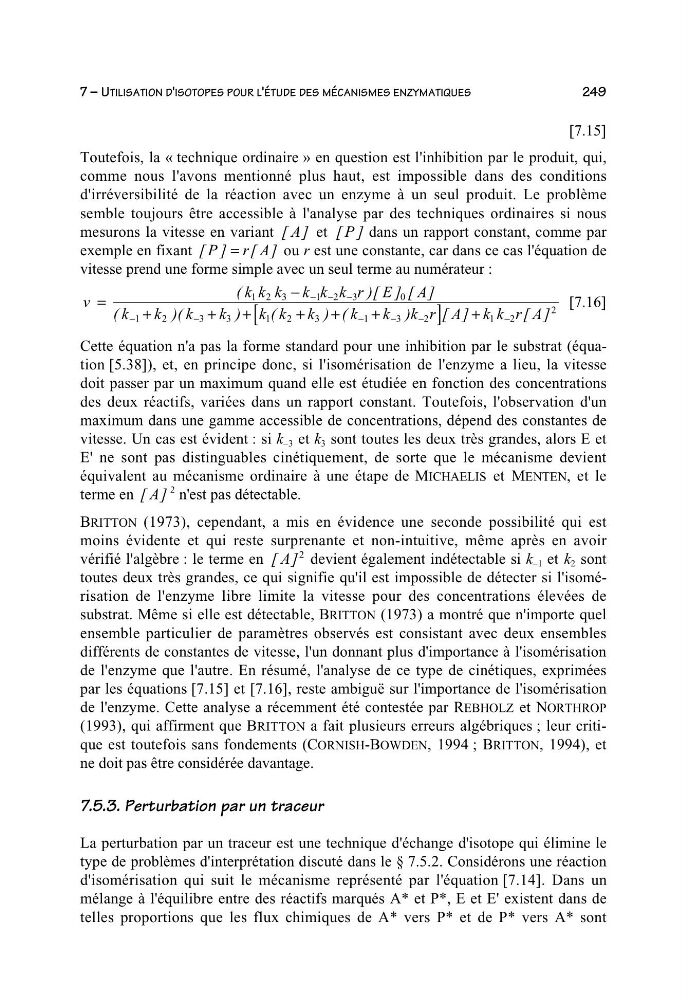
Cette équation n'a pas la forme standard pour une inhibition par le substrat (équation [5.38]), et, en principe donc, si l'isomérisation de l'enzyme a lieu, la vitesse
doit passer par un maximum quand elle est étudiée en fonction des concentrations
des deux réactifs, variées dans un rapport constant. Toutefois, l'observation d'un
maximum dans une gamme accessible de concentrations, dépend des constantes de
vitesse. Un cas est évident : si k –3 et k 3 sont toutes les deux très grandes, alors E et
E' ne sont pas distinguables cinétiquement, de sorte que le mécanisme devient
équivalent au mécanisme ordinaire à une étape de MICHAELIS et MENTEN, et le
terme en [] A
2 n'est pas détectable.
BRITTON (1973), cependant, a mis en évidence une seconde possibilité qui est
moins évidente et qui reste surprenante et non-intuitive, même après en avoir
vérifié l'algèbre : le terme en [] A
2
devient également indétectable si k –1 et k 2 sont
toutes deux très grandes, ce qui signifie qu'il est impossible de détecter si l'isomérisation de l'enzyme libre limite la vitesse pour des concentrations élevées de
substrat. Même si elle est détectable, BRITTON (1973) a montré que n'importe quel
ensemble particulier de paramètres observés est consistant avec deux ensembles
différents de constantes de vitesse, l'un donnant plus d'importance à l'isomérisation
de l'enzyme que l'autre. En résumé, l'analyse de ce type de cinétiques, exprimées
par les équations [7.15] et [7.16], reste ambiguë sur l'importance de l'isomérisation
de l'enzyme. Cette analyse a récemment été contestée par REBHOLZ et NORTHROP
(1993), qui affirment que BRITTON a fait plusieurs erreurs algébriques ; leur critique est toutefois sans fondements (CORNISH-BOWDEN, 1994 ; BRITTON, 1994), et
ne doit pas être considérée davantage.
7.5.3. Perturbation par un traceur
La perturbation par un traceur est une technique d'échange d'isotope qui élimine le
type de problèmes d'interprétation discuté dans le § 7.5.2. Considérons une réaction
d'isomérisation qui suit le mécanisme représenté par l'équation [7.14]. Dans un
mélange à l'équilibre entre des réactifs marqués A* et P*, E et E' existent dans de
telles proportions que les flux chimiques de A* vers P* et de P* vers A* sont