

6 – RÉACTIONS À PLUSIEURS SUBSTRATS
225
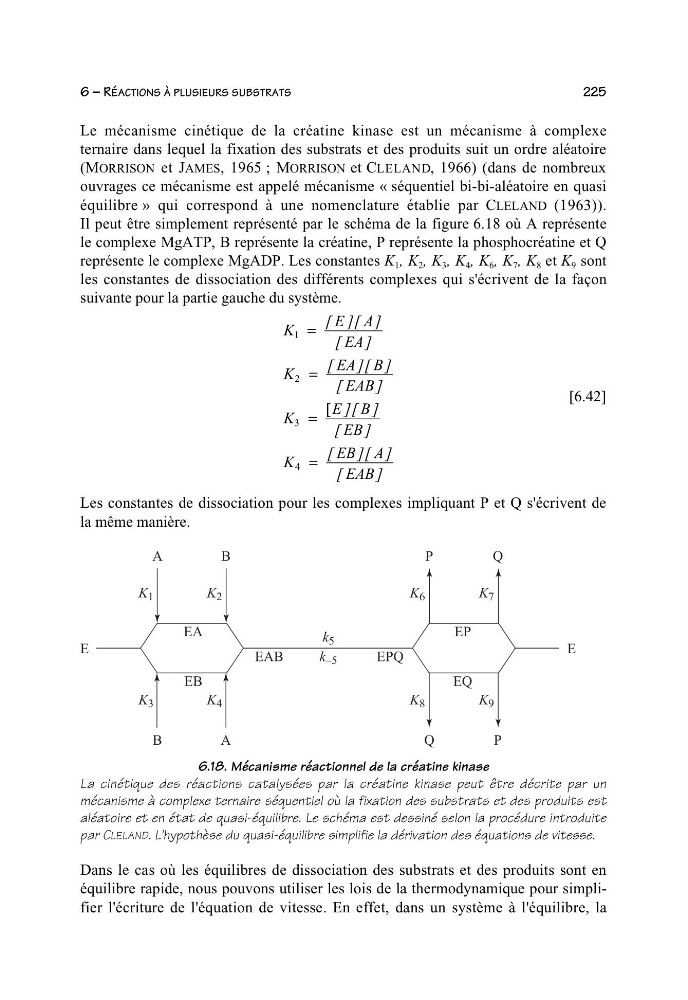
Le mécanisme cinétique de la créatine kinase est un mécanisme à complexe
ternaire dans lequel la fixation des substrats et des produits suit un ordre aléatoire
(MORRISON et JAMES, 1965 ; MORRISON et CLELAND, 1966) (dans de nombreux
ouvrages ce mécanisme est appelé mécanisme « séquentiel bi-bi-aléatoire en quasi
équilibre » qui correspond à une nomenclature établie par CLELAND (1963)).
Il peut être simplement représenté par le schéma de la figure 6.18 où A représente
le complexe MgATP, B représente la créatine, P représente la phosphocréatine et Q
représente le complexe MgADP. Les constantes K 1 , K 2 , K 3 , K 4 , K 6 , K 7 , K 8 et K 9 sont
les constantes de dissociation des différents complexes qui s'écrivent de la façon
suivante pour la partie gauche du système.
K
EA
EA
K
EA B
EAB
K
EB
EB
K
EB A
EAB
1
2
3
4
[
=
=
=
=
[] []
[]
[] [ ]
[]
][ ]
[]
[] [ ]
[]
[6.42]
Les constantes de dissociation pour les complexes impliquant P et Q s'écrivent de
la même manière.
A
E
EA
EAB
EPQ
EP
EB
EQ
E
k –5
k 5
B
QP
BA
P
Q
K 1
K 2
K 6
K 7
K 3
K 4
K 8
K 9
6.18. Mécanisme réactionnel de la créatine kinase
La cinétique des réactions catalysées par la créatine kinase peut être décrite par un
mécanisme à complexe ternaire séquentiel où la fixation des substrats et des produits est
aléatoire et en état de quasi-équilibre. Le schéma est dessiné selon la procédure introduite
par CLELAND. L'hypothèse du quasi-équilibre simplifie la dérivation des équations de vitesse.
Dans le cas où les équilibres de dissociation des substrats et des produits sont en
équilibre rapide, nous pouvons utiliser les lois de la thermodynamique pour simplifier l'écriture de l'équation de vitesse. En effet, dans un système à l'équilibre, la