

5 – INHIBITION ET ACTIVATION DES ENZYMES
159
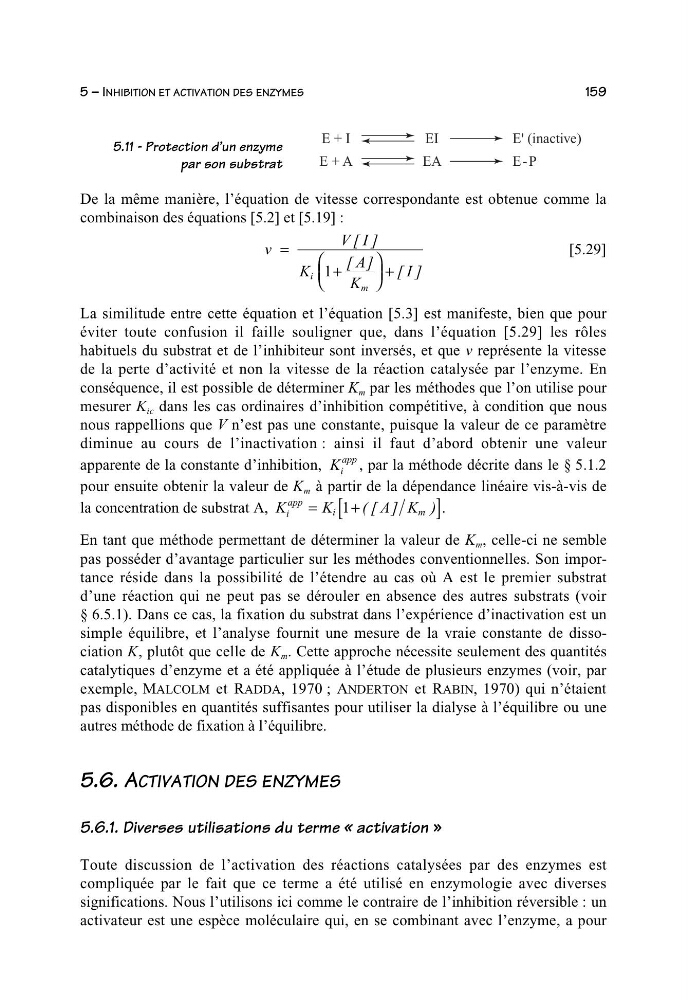
5.11 - Protection d’un enzyme
par son substrat
De la même manière, l’équation de vitesse correspondante est obtenue comme la
combinaison des équations [5.2] et [5.19] :
v
VI
K
A
K
I
i
m
=
+
⎛
⎝
⎜
⎞
⎠
⎟ +
[]
[] []
1
[5.29]
La similitude entre cette équation et l’équation [5.3] est manifeste, bien que pour
éviter toute confusion il faille souligner que, dans l’équation [5.29] les rôles
habituels du substrat et de l’inhibiteur sont inversés, et que v représente la vitesse
de la perte d’activité et non la vitesse de la réaction catalysée par l’enzyme. En
conséquence, il est possible de déterminer K m par les méthodes que l’on utilise pour
mesurer K ic dans les cas ordinaires d’inhibition compétitive, à condition que nous
nous rappellions que V n’est pas une constante, puisque la valeur de ce paramètre
diminue au cours de l’inactivation : ainsi il faut d’abord obtenir une valeur
apparente de la constante d’inhibition, K i
app , par la méthode décrite dans le § 5.1.2
pour ensuite obtenir la valeur de K m à partir de la dépendance linéaire vis-à-vis de
la concentration de substrat A, KK
A K
i
app
im
=+ [
]
1 ([ ]
) .
En tant que méthode permettant de déterminer la valeur de K m , celle-ci ne semble
pas posséder d’avantage particulier sur les méthodes conventionnelles. Son importance réside dans la possibilité de l’étendre au cas où A est le premier substrat
d’une réaction qui ne peut pas se dérouler en absence des autres substrats (voir
§ 6.5.1). Dans ce cas, la fixation du substrat dans l’expérience d’inactivation est un
simple équilibre, et l’analyse fournit une mesure de la vraie constante de dissociation K, plutôt que celle de K m . Cette approche nécessite seulement des quantités
catalytiques d’enzyme et a été appliquée à l’étude de plusieurs enzymes (voir, par
exemple, MALCOLM et RADDA, 1970 ; ANDERTON et RABIN, 1970) qui n’étaient
pas disponibles en quantités suffisantes pour utiliser la dialyse à l’équilibre ou une
autres méthode de fixation à l’équilibre.
5.6. ACTIVATION DES ENZYMES
5.6.1. Diverses utilisations du terme « activation »
Toute discussion de l’activation des réactions catalysées par des enzymes est
compliquée par le fait que ce terme a été utilisé en enzymologie avec diverses
significations. Nous l’utilisons ici comme le contraire de l’inhibition réversible : un
activateur est une espèce moléculaire qui, en se combinant avec l’enzyme, a pour
E + A
E-P
E + I
EI
E' (inactive)
EA