

PROTIDES.
PROTÉINES
77
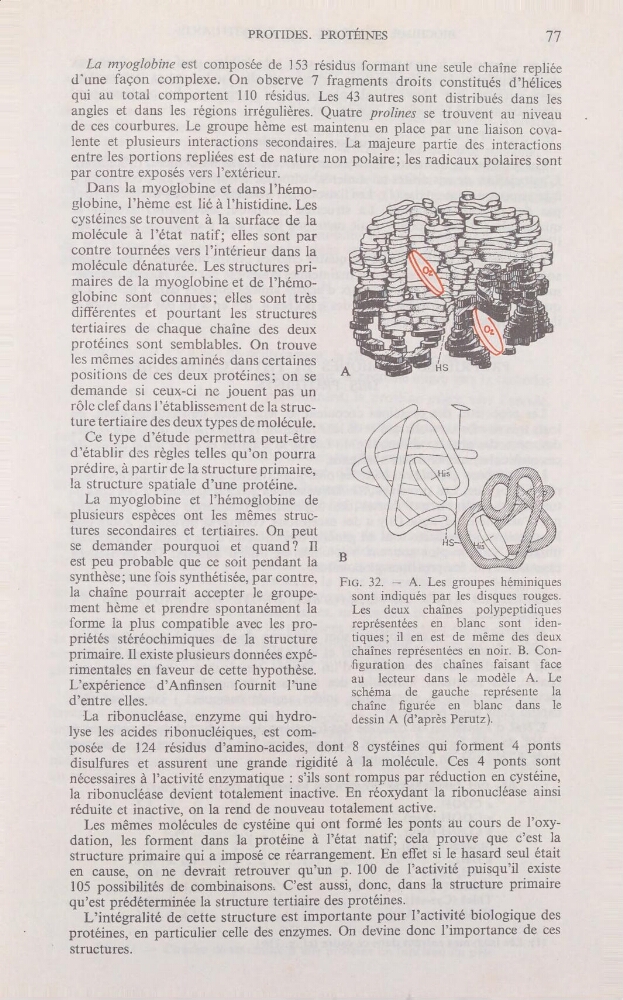
La myoglobine est composée de lS3résidus formant une seule chaîne repliée
d'une façon complexe. On observe 7 fragments droits constitués d’hélices
qui au total comportent 110 résidus. Les 43 autres sont distribués dans les
'
angles et dans les régions irrégulières. Quatre prolines se trouvent au niveau
.
de ces courbures. Le groupe hème est maintenu en place par une liaison covalente et plusieurs interactions secondaires. La majeure partie des interactions
entre les portions repliées est de nature non polaire; les radicaux polaires sont
par contre exposés vers l’extérieur.
Dans la myoglobine et dans l’hémoglobine, l’hème est lié à l’histidine. Les
.
.
cystéines se trouvent à la surface de la
_
molécule à l’état natif; elles sont par
.
contre tournées vers l’intérieur dans la
.
_
'
molécule dénaturée. Les structures pri—
_
maires de la myoglobine et de l’hémo—
-
globine sont connues; elles sont très
_
_
'
différentes et pourtant les structures
-
_
.
_._' .
tertiaires de chaque chaîne des deux
protéines sont semblables. On trouve
_
les mêmes acides aminés dans certaines
'
‘
'
'
S
'
positions de ces deux protéines; on se
A
demande si ceux—ci ne jouent pas un
rôle clef dans l’établissement de la struc—
‘
ture tertiaire des deux types de molécule.
Ce type d’étude permettra peut—être
‘.
d’établir des règles telles qu’on pourra
_
—
prédire, àpartir de la structure primaire,
////%///,//
la structure spatiale d’une protéine.
‘
—
…
La myoglobine et l’hémoglobine de
plusieurs espèces ont les mêmes struc‘
/
@
tures secondaires et tertiaires. On peut
;
%
/'/
-
HS //
.
/ %
se
demander pourquor
et
quand? Il
.
@
est peu probable que ce soit pendant la
B
'
”W/j////Æ/
synthèse; une fois synthétisée, par contre,
PIG. 32_ _ A. Les groupes hén1iniques
la chaîne pourrait accepter le groupe—
sont indiqués par les disques rouges.
ment hème et prendre spontanément la
Les
deux
chaînes
polypeptidiques
forme la plus compatible avec les pro—
représentées en blanc
sont
iden—
priétés_ stéréochimiques de la structure
tiquÿ$;
11 en
est
meme
des deux
primaire. Il existe plusieurs données expé—
r1mentales
en faveur de cette hypotbese.
35 lecteur dans le modèle A. Le
L’expérience d’Annsen fourmt lune
schéma
de
gauche
représente
la
d’entre elleschaîne
gurée
en
blanc
dans
le
La ribonucléase, enzyme qui hydrodessin A (d’après Perutz).
_
_
lyse les acides ribonucléiques, est com— "
_
_
posée de 124 résidus d’amino-acides, dont 8 cystémes qui forment 4 ponts
disulfures et assurent une grande rigidité à la molécule. Ces_
4 ponts sont
nécessaires à l’activité enzymatique : s’ils sont rompus par réduction en cysterne,
la ribonucléase devient totalement inactive. En réoxydant la ribonucléase a1n81
réduite et inactive, on la rend de nouveau totalement active.
Les mêmes molécules de cystéine qui ont formé les ponts au cours
de l’oxydation, les forment dans la protéine à l’état natif; cela prouve que c’est la
structure primaire qui a imposé ce réarrangement. En eet s1_le hasard seul etait
en
cause, on ne devrait retrouver qu’un p. 100 de l’act1v1té puisqu’il _ex1ste
105 possibilités de combinaisons—. C’est aussi, donc, dans la structure primaire
qu’est prédéterminée la structure tertiaire des protéines.
_
,
_
L’intégralité de cette structure est importante pour l’act1vrte
biologique des
'
protéines,» en particulier celle des enzymes. On devme donc lnnportance de ces
‘
structures.
’
,