

142
_BIOCHIMIE
GÉNÉRALE. LES CONSTITUANTS
THÉORIE DE E. FISCHER, HENRI, MICHAÊLIS, HALDANE (1)
_
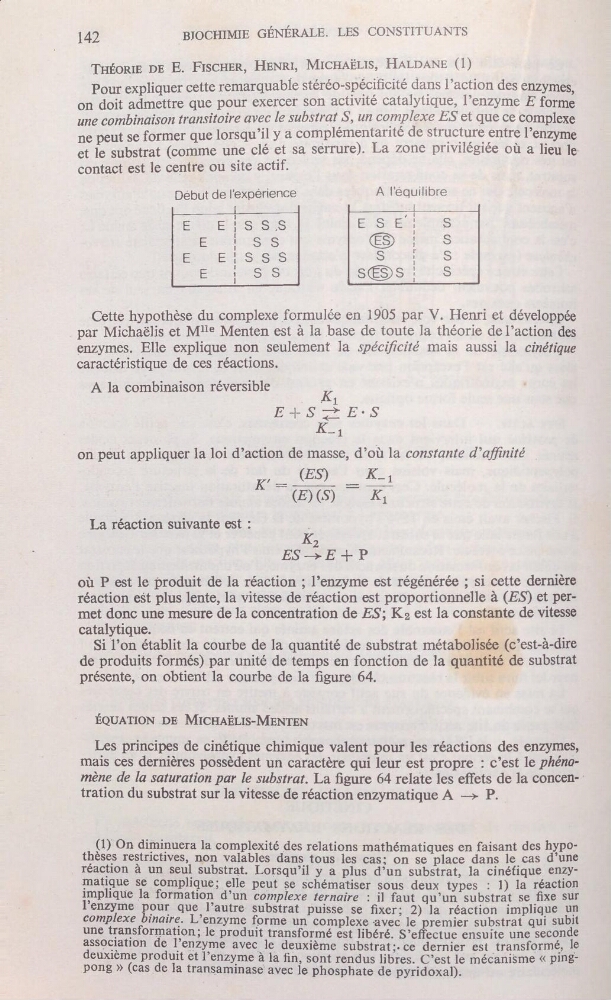
Pour expliquer cette remarquable stéréo-spécicité dans
l’action des enzymes,
on doit admettre que pour exercer son actrv1té catalytique, l’enzyme E forme
une combinaison transitoire avec le substrat S, un complexe
ES et que ce complexe
ne peut se former que lorsqu’il y a complémentar1te
de structure entre l’enzyme
'
.
et le substrat (comme une clé et sa serrure).
La zone pr1v1leg1ee où a lieu le
contact est le centre ou site actif.
_
-
'
_
Début de l’expérience
‘
.
A l’équilibre
'
“
_
"E
Eîss,s
ESE'Ë
s
.
'
-
.
-E
:
s s
@
;.
s
_
E
E : s s s
s
;
s
|
|
'
,
,
E
t
s s
s®s ;
s
.
Cette hypothèse du complexe formulée en 1905 par V. Henri et développée
_
par Michaëlis et Mlle Menten est à la base de toute la théorie de l’action des
enzymes. Elle explique non seulement la spécicité mais aussi la cinétique
caractéristique de ces réactions.
A la combinaison réversible
K
_
'
’
.
.
1
«
,
.
E + S 2 E - S
.
.
_
'
K_
1
.
on peut appliquer la loi d’action de masse, d’où la constante d’aînité
_
'
—
K, =
@
_
£—_1
_
_
=
(EMS)
K.
_
La réaction suivante est, :
'
.
.
'
K2
..
.
'
ES —> E + P
où P est le produit de la réaction ; l’enzyme est régénérée ; si cette dernière
réaction est plus lente, la vitesse de réaction est proportionnelle à (ES) et per‘
met donc une mesure de la concentration de ES; K2 est la constante de vitesse
catalytique.
'
_
.
_
Si l’on établit la courbe de la quantité de substrat métabolisée (c’est-à—dire
'
de produits formés) par unité de temps en fonction de la quantité de substrat
présente,-on obtient la courbe de la gue 64.
_
—
'
ÉQUATION DE MICHAËLIS-MÉNÏEN
.
principes
de cinétique chimique valent pour les réactions des enzymes,
mans ces dermeres possèdent un caractère qui leur est propre : c’est le phénomen_e
de la saturation par le substrat. La gure 64 relate les effets de la comen—'
tration du substrat sur la vitesse de réaction enzymatique A —> P.
(1)”On diminuera la complexité des relations mathématiques en faisant des hypo—
thèses ;Iestnctwes, non valables dans tous les cas; on se place dans le cas d’une
-
reaction & un SCH1_ substrat. Lorsqu’il y a plus d’un substrat, la cinétique enzymatique se compllque;elle peut se Schémat—iser sous.deux types : 1) la réaction
-
1{nPhque la formation
d un complexe
:
il faut qu’un substrat se xesur
.
lenzyme
autre substrat puisse se xer; 2) la réaction implique un
complexe bma1re_. L enzyme f_orme un complexe avec le premier substrat qui 'sub
.
une transformation;-le produ1t transformé est libéré. S’eectue ensuite une seconde
_
_ËSSQC}_3UOH
de 1_CQZYPîC
deuxième substr'at;-ce dernier est transformé,_16
eux1eme produ1t et] enzyme a la n, sOnt rendus libres. C’est le mécanisme « ping—
pong » (cas
1? transamma3e‘ avec le phosphate de pyridoxal).