

56
B IOLOGIE CELLULAIRE
dence une séquence homologue dans une structure, de la même façon que les biologistes moléculaires détectent des séquences sur des filtres
résultant du transfert de gels d’électrophorèse. Les
sondes simple-brin sont marquées in vitro soit
radioactivement, soit chimiquement, par des protocoles appropriés ;i l existe des sondes dites
«froides», détectables de différentes manières, y
compris immunologiquement.
L’ADN ou l’ARN cibles étant inclus dans les
cellules entières fixées, dans des coupes ou des
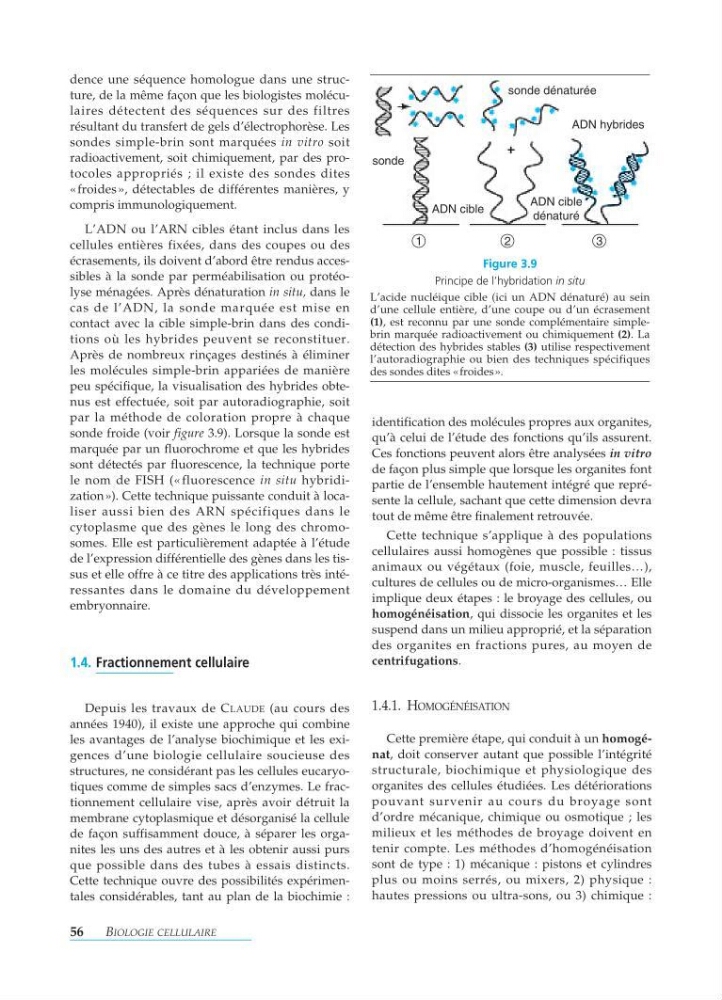
écrasements, ils doivent d’abord être rendus accessibles à la sonde par perméabilisation ou protéolyse ménagées. Après dénaturation in situ, dans le
cas de l’ADN, la sonde marquée est mise en
contact avec la cible simple-brin dans des conditions où les hybrides peuvent se reconstituer.
Après de nombreux rinçages destinés à éliminer
les molécules simple-brin appariées de manière
peu spécifique, la visualisation des hybrides obtenus est effectuée, soit par autoradiographie, soit
par la méthode de coloration propre à chaque
sonde froide (voir figure 3.9). Lorsque la sonde est
marquée par un fluorochrome et que les hybrides
sont détectés par fluorescence, la technique porte
le nom de FISH (« fluorescence in situ hybridization»). Cette technique puissante conduit à localiser aussi bien des ARN spécifiques dans le
cytoplasme que des gènes le long des chromosomes. Elle est particulièrement adaptée à l’étude
de l’expression différentielle des gènes dans les tissus et elle offre à ce titre des applications très intéressantes dans le domaine du développement
embryonnaire.
1.4. Fractionnement cellulaire
Depuis les travaux de C LAUDE (au cours des
années 1940), il existe une approche qui combine
les avantages de l’analyse biochimique et les exigences d’une biologie cellulaire soucieuse des
structures, ne considérant pas les cellules eucaryotiques comme de simples sacs d’enzymes. Le fractionnement cellulaire vise, après avoir détruit la
membrane cytoplasmique et désorganisé la cellule
de façon suffisamment douce, à séparer les organites les uns des autres et à les obtenir aussi purs
que possible dans des tubes à essais distincts.
Cette technique ouvre des possibilités expérimentales considérables, tant au plan de la biochimie :
identification des molécules propres aux organites,
qu’à celui de l’étude des fonctions qu’ils assurent.
Ces fonctions peuvent alors être analysées in vitro
de façon plus simple que lorsque les organites font
partie de l’ensemble hautement intégré que représente la cellule, sachant que cette dimension devra
tout de même être finalement retrouvée.
Cette technique s’applique à des populations
cellulaires aussi homogènes que possible : tissus
animaux ou végétaux (foie, muscle, feuilles…),
cultures de cellules ou de micro-organismes… Elle
implique deux étapes : le broyage des cellules, ou
homogénéisation, qui dissocie les organites et les
suspend dans un milieu approprié, et la séparation
des organites en fractions pures, au moyen de
centrifugations.
1.4.1. H OMOGÉNÉISATION
Cette première étape, qui conduit à un homogénat, doit conserver autant que possible l’intégrité
structurale, biochimique et physiologique des
organites des cellules étudiées. Les détériorations
pouvant survenir au cours du broyage sont
d’ordre mécanique, chimique ou osmotique ;l es
milieux et les méthodes de broyage doivent en
tenir compte. Les méthodes d’homogénéisation
sont de type : 1) mécanique : pistons et cylindres
plus ou moins serrés, ou mixers, 2) physique :
hautes pressions ou ultra-sons, ou 3) chimique :
sonde
sonde dénaturée
ADN hybrides
ADN cible
dénaturé
ADN cible
1
2
3
Figure 3.9
Principe de l’hybridation in situ
L’acide nucléique cible (ici un ADN dénaturé) au sein
d’une cellule entière, d’une coupe ou d’un écrasement
(1), est reconnu par une sonde complémentaire simplebrin marquée radioactivement ou chimiquement (2). La
détection des hybrides stables (3) utilise respectivement
l’autoradiographie ou bien des techniques spécifiques
des sondes dites «froides ».