

2. O RGANISATION CELLULAIRE
33
© Dunod – La photocopie non autorisée est un délit.
met l’observation de tissus massifs, dont elle
donne une vue interne qui n’est pas le résultat
d’une coupe, mais celui d’une fracture. Les images
obtenues sont, au départ, un peu déroutantes car
très différentes de celles que donnent des coupes.
La différence tient au fait que la fracture arrache
des morceaux de cytoplasme, généralement en
passant à travers les membranes cellulaires (voir
encart détaillé dans le chapitre 5). Les organites
sphériques apparaissent, suivant qu’ils ont été
enlevés ou pas, comme des creux ou des bosses ;
on reconnaît cependant aisément tous les organites
et toutes les structures classiques.
Cette technique présente deux avantages considérables : 1) elle permet de travailler sur un matériel congelé dont la structure est aussi proche que
possible de la structure native et 2) elle permet
d’observer l’organisation superficielle des membranes cellulaires, ce que les coupes n’autorisent
pas, sauf dans le cas (rare) de coupes tangentielles.
2.5.3. M ICROSCOPIE ÀB ALAYAGE
La microscopie à balayage est la technique privilégiée d’observation des surfaces. Grâce à sa profondeur de champ exceptionnelle, le microscope
utilisé permet d’observer des préparations de
grande taille, avec d’importants reliefs. La résolution est plus faible que celle du microscope à
transmission classique (1 nm) ; les grossissements
vont de 20 à 400 000, et la profondeur de champ
peut atteindre plusieurs mm aux faibles grossissements. C’est cette technique qui permet d’obtenir
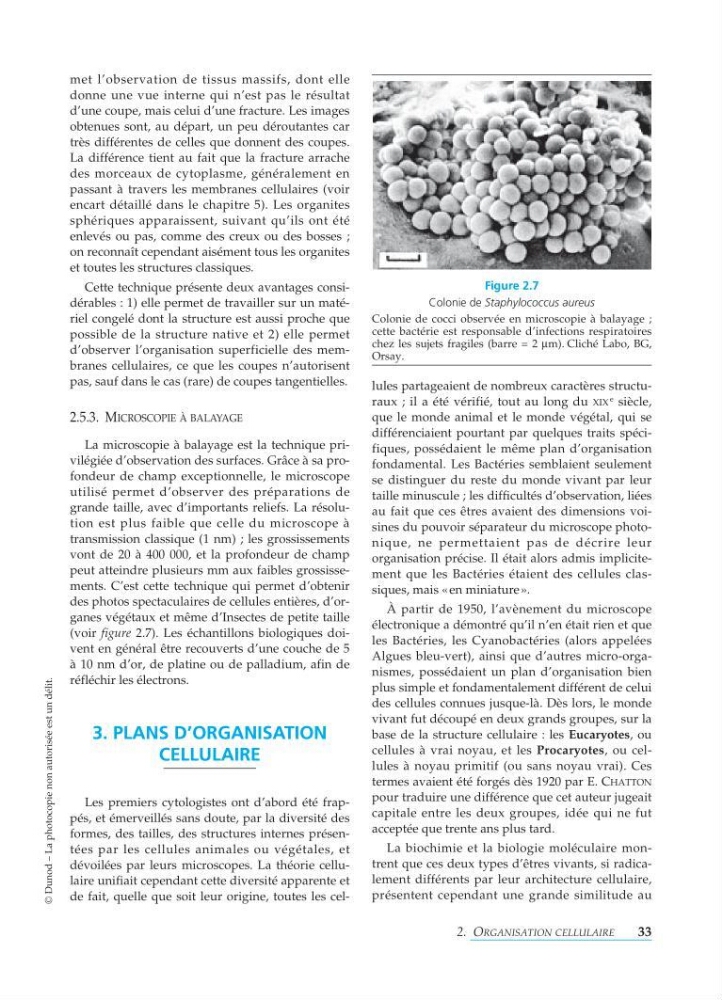
des photos spectaculaires de cellules entières, d’organes végétaux et même d’Insectes de petite taille
(voir figure 2.7). Les échantillons biologiques doivent en général être recouverts d’une couche de 5
à 10 nm d’or, de platine ou de palladium, afin de
réfléchir les électrons.
3. PLANS D’ORGANISATION
CELLULAIRE
Les premiers cytologistes ont d’abord été frappés, et émerveillés sans doute, par la diversité des
formes, des tailles, des structures internes présentées par les cellules animales ou végétales, et
dévoilées par leurs microscopes. La théorie cellulaire unifiait cependant cette diversité apparente et
de fait, quelle que soit leur origine, toutes les cellules partageaient de nombreux caractères structuraux ; il a été vérifié, tout au long du XIX
e
siècle,
que le monde animal et le monde végétal, qui se
différenciaient pourtant par quelques traits spécifiques, possédaient le même plan d’organisation
fondamental. Les Bactéries semblaient seulement
se distinguer du reste du monde vivant par leur
taille minuscule ; les difficultés d’observation, liées
au fait que ces êtres avaient des dimensions voisines du pouvoir séparateur du microscope photonique, ne permettaient pas de décrire leur
organisation précise. Il était alors admis implicitement que les Bactéries étaient des cellules classiques, mais «en miniature ».
À partir de 1950, l’avènement du microscope
électronique a démontré qu’il n’en était rien et que
les Bactéries, les Cyanobactéries (alors appelées
Algues bleu-vert), ainsi que d’autres micro-organismes, possédaient un plan d’organisation bien
plus simple et fondamentalement différent de celui
des cellules connues jusque-là. Dès lors, le monde
vivant fut découpé en deux grands groupes, sur la
base de la structure cellulaire : les Eucaryotes, ou
cellules à vrai noyau, et les Procaryotes, ou cellules à noyau primitif (ou sans noyau vrai). Ces
termes avaient été forgés dès 1920 par E. C HATTON
pour traduire une différence que cet auteur jugeait
capitale entre les deux groupes, idée qui ne fut
acceptée que trente ans plus tard.
La biochimie et la biologie moléculaire montrent que ces deux types d’êtres vivants, si radicalement différents par leur architecture cellulaire,
présentent cependant une grande similitude au
Figure 2.7
Colonie de Staphylococcus aureus
Colonie de cocci observée en microscopie à balayage ;
cette bactérie est responsable d’infections respiratoires
chez les sujets fragiles (barre = 2 µ m). Cliché Labo, BG,
Orsay.