

14. D EL AC ELLULE ÀL ’ ORGANISME.L AD IFFÉRENCIATION CELLULAIRE 439
© Dunod – La photocopie non autorisée est un délit.
elles permettent l’accrochage physique entre les
deux, mais elles servent ainsi de relais et de système de transmission de signaux (transduction)
entre la matrice et le cytosquelette (voir chapitre 11). Elles sont une des clefs des interactions
entre la cellule et son environnement immédiat ;
de nombreux exemples en seront donnés plus loin.
De plus, elles sont impliquées dans les déplacements des cellules sur leur substrat, d’où leur rôle
capital au cours du développement embryonnaire.
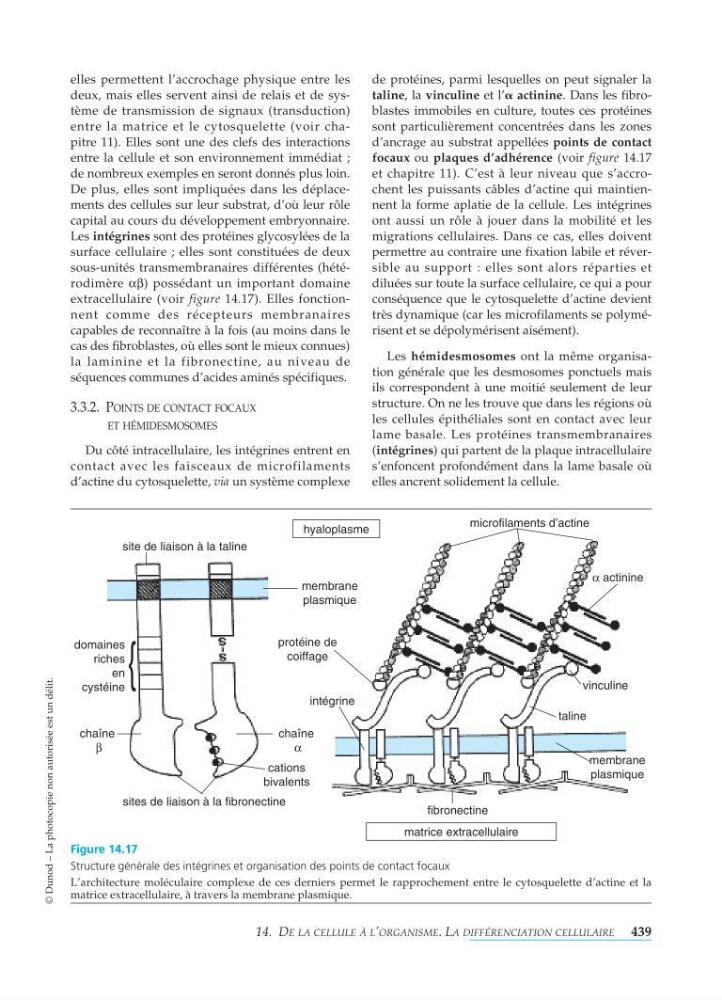
Les intégrines sont des protéines glycosylées de la
surface cellulaire ; elles sont constituées de deux
sous-unités transmembranaires différentes (hétérodimère αβ) possédant un important domaine
extracellulaire (voir figure 14.17). Elles fonctionnent comme des récepteurs membranaires
capables de reconnaître à la fois (au moins dans le
cas des fibroblastes, où elles sont le mieux connues)
la laminine et la fibronectine, au niveau de
séquences communes d’acides aminés spécifiques.
3.3.2. P OINTS DE CONTACT FOCAUX
ET HÉMIDESMOSOMES
Du côté intracellulaire, les intégrines entrent en
contact avec les faisceaux de microfilaments
d’actine du cytosquelette, via un système complexe
de protéines, parmi lesquelles on peut signaler la
taline, la vinculine et l’G actinine. Dans les fibroblastes immobiles en culture, toutes ces protéines
sont particulièrement concentrées dans les zones
d’ancrage au substrat appellées points de contact
focaux ou plaques d’adhérence (voir figure 14.17
et chapitre 11). C’est à leur niveau que s’accrochent les puissants câbles d’actine qui maintiennent la forme aplatie de la cellule. Les intégrines
ont aussi un rôle à jouer dans la mobilité et les
migrations cellulaires. Dans ce cas, elles doivent
permettre au contraire une fixation labile et réversible au support : elles sont alors réparties et
diluées sur toute la surface cellulaire, ce qui a pour
conséquence que le cytosquelette d’actine devient
très dynamique (car les microfilaments se polymérisent et se dépolymérisent aisément).
Les hémidesmosomes ont la même organisation générale que les desmosomes ponctuels mais
ils correspondent à une moitié seulement de leur
structure. On ne les trouve que dans les régions où
les cellules épithéliales sont en contact avec leur
lame basale. Les protéines transmembranaires
( intégrines) qui partent de la plaque intracellulaire
s’enfoncent profondément dans la lame basale où
elles ancrent solidement la cellule.
site de liaison à la taline
microfilaments d’actine
sites de liaison à la fibronectine
membrane
plasmique
α actinine
membrane
plasmique
vinculine
intégrine
taline
fibronectine
protéine de
coiffage
cations
bivalents
chaîne
β
chaîne
α
domaines
riches
en
cystéine
hyaloplasme
matrice extracellulaire
}
Figure 14.17
Structure générale des intégrines et organisation des points de contact focaux
L’architecture moléculaire complexe de ces derniers permet le rapprochement entre le cytosquelette d’actine et la
matrice extracellulaire, à travers la membrane plasmique.