

434 B IOLOGIE CELLULAIRE
de collagène (correspondant chacune à un gène
particulier) qui s’organisent pour donner une
dizaine de combinaisons, dont quatre sont
majeures : les collagènes I, II et III se retrouvent
dans le conjonctif, tandis que la forme IV est spécifique des lames basales. Les premiers forment de
longues fibres résultant de l’accolement (avec un
léger décalage de 67 nm) de multiples structures
de base tricaténaires ; celles-ci sont liées les unes
aux autres par un nombre élevé de liaisons hydrogène interchaînes (entre résidus hydroxyproline)
ainsi que par quelques liaisons covalentes. Dans
de nombreux tissus, les fibres de collagène sont
organisées en faisceaux parallèles plus ou moins
serrés prenant parfois une disposition en contreplaqué, particulièrement rigide (os, peau, cornée).
Le collagène de type IV forme plutôt des structures en réseau aplati de 50 à 100 nm d’épaisseur.
• L’élastine est une protéine de 830 acides aminés, non glycosylée, riche en glycine et en proline,
plutôt hydrophobe. De façon unique, elle n’a pas
une structure précise, organisée dans l’espace ;
cette disposition aléatoire de la chaîne polypeptidique, ajoutée au fait que les diverses molécules
sont pontées entre elles, conduit à réaliser un édifice ayant des propriétés élastiques remarquables.
On la trouve dans des tissus où l’élasticité a un
rôle physiologique important à jouer : peau, poumons, vaisseaux sanguins.
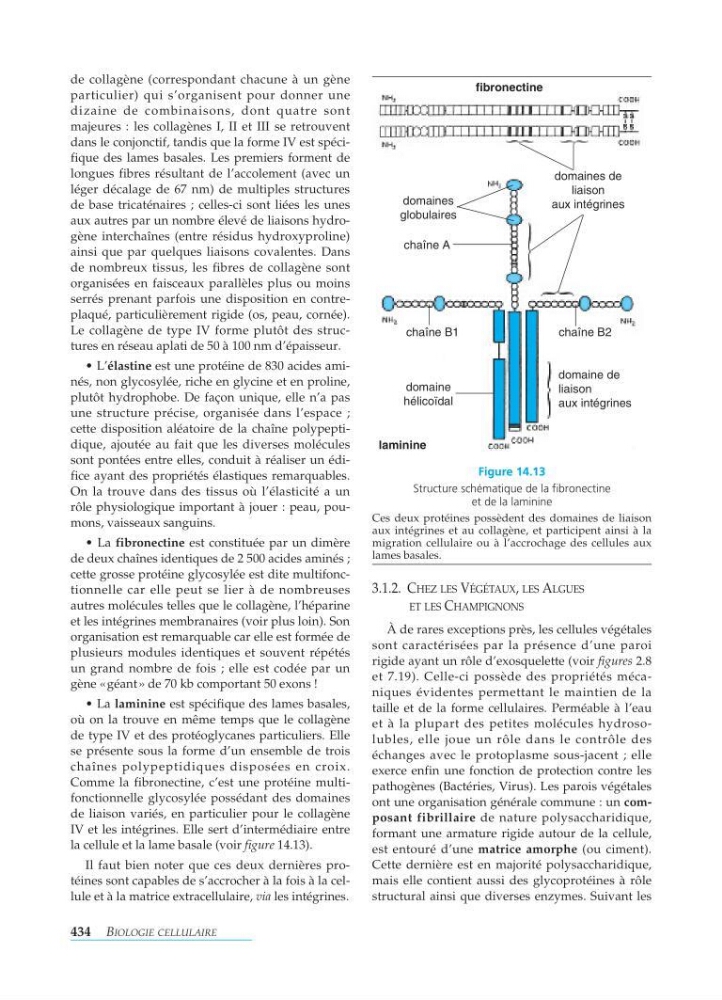
• La fibronectine est constituée par un dimère
de deux chaînes identiques de 2 500 acides aminés ;
cette grosse protéine glycosylée est dite multifonctionnelle car elle peut se lier à de nombreuses
autres molécules telles que le collagène, l’héparine
et les intégrines membranaires (voir plus loin). Son
organisation est remarquable car elle est formée de
plusieurs modules identiques et souvent répétés
un grand nombre de fois ; elle est codée par un
gène «géant» de 70 kb comportant 50 exons !
• La laminine est spécifique des lames basales,
où on la trouve en même temps que le collagène
de type IV et des protéoglycanes particuliers. Elle
se présente sous la forme d’un ensemble de trois
chaînes polypeptidiques disposées en croix.
Comme la fibronectine, c’est une protéine multifonctionnelle glycosylée possédant des domaines
de liaison variés, en particulier pour le collagène
IV et les intégrines. Elle sert d’intermédiaire entre
la cellule et la lame basale (voir figure 14.13).
Il faut bien noter que ces deux dernières protéines sont capables de s’accrocher à la fois à la cellule et à la matrice extracellulaire, via les intégrines.
3.1.2. C HEZ LES V ÉGÉTAUX, LES A LGUES
ET LES C HAMPIGNONS
À de rares exceptions près, les cellules végétales
sont caractérisées par la présence d’une paroi
rigide ayant un rôle d’exosquelette (voir figures 2.8
et 7.19). Celle-ci possède des propriétés mécaniques évidentes permettant le maintien de la
taille et de la forme cellulaires. Perméable à l’eau
et à la plupart des petites molécules hydrosolubles, elle joue un rôle dans le contrôle des
échanges avec le protoplasme sous-jacent ; elle
exerce enfin une fonction de protection contre les
pathogènes (Bactéries, Virus). Les parois végétales
ont une organisation générale commune : un composant fibrillaire de nature polysaccharidique,
formant une armature rigide autour de la cellule,
est entouré d’une matrice amorphe (ou ciment).
Cette dernière est en majorité polysaccharidique,
mais elle contient aussi des glycoprotéines à rôle
structural ainsi que diverses enzymes. Suivant les
Figure 14.13
Structure schématique de la fibronectine
et de la laminine
Ces deux protéines possèdent des domaines de liaison
aux intégrines et au collagène, et participent ainsi à la
migration cellulaire ou à l’accrochage des cellules aux
lames basales.
fibronectine
domaines de
liaison
aux intégrines
domaine de
liaison
aux intégrines
domaines
globulaires
domaine
hélicoïdal
chaîne A
chaîne B1
laminine
chaîne B2