

pore central dont le diamètre est de 2 à 3n m;
chaque sous-unité est formée d’une seule chaîne
polypeptidique traversant 4f ois la bicouche phospholipidique. Des centaines ou des milliers de
connexons opposés et juxtaposés constituent une
jonction communicante ; ils sont aisément visibles
grâce à la technique de cryodécapage.
L’existence de ces canaux a été soupçonnée
avant même qu’on les observe, grâce à des expériences d’électrophysiologie qui démontraient que
des cellules voisines étaient le plus souvent électriquement couplées (d’où leur nom de synapses
électriques). La démonstration directe a été faite
en injectant, dans les cellules, des composés (en
général, des substances fluorescentes) dont on on
pouvait suivre la diffusion dans les cellules voisines. Ces pores laissent passer librement d’une
cellule à l’autre des molécules ayant une masse
moléculaire allant jusqu’à 12 00 Da ; il s’agit de
nutriments (glucose, acides aminés, nucléotides)
ou de molécules et d’ions ayant un rôle de médiateur ou de messager intracellulaire (AMP cyclique,
ions Ca
2+
). Les jonctions communicantes permettent donc, non seulement d’assurer une coopération métabolique entre cellules, mais aussi et
surtout une coordination des activités ou des
réponses à des stimuli tels que les hormones. Une
particularité de ces jonctions est que leur perméabilité est régulée, en ce sens que certains facteurs,
tels qu’une concentration intracellulaire élevée en
ions Ca
2+
, peuvent conduire à leur fermeture, à la
suite d’un changement de conformation des sousunités constitutives.
Quelques exemples de fonctions associées à ces
jonctions peuvent être donnés.
• Les cellules du muscle cardiaque des
Vertébrés, celles des muscles lisses, possèdent de
nombreuses jonctions de ce type ; en permettant le
passage rapide des ions Ca
2+
, elles assurent la
coordination des contractions de toutes les cellules
d’une même région du cœur ou du muscle.
• Dans les épithéliums ciliés (bronches, oviducte), le battement coordonné des cils serait également lié à leur présence.
• Chez tous les embryons (à partir du stade
«8 cellules» chez la souris, ou au stade blastula
chez la grenouille, par exemple), on constate que
de nombreuses cellules sont couplées par ces jonctions. Leur rôle est d’assurer de manière coordonnée, au sein d’un massif cellulaire donné, une voie
de développement unique par couplage trophique
et hormonal. Ceci a été démontré au moyen
d’injections, dans ces cellules, d’anticorps anticonnexine (voir plus loin) : le développement
embryonnaire s’en trouve alors très perturbé.
2.2.2. P ERFORATIONS EXISTANT
ENTRE CELLULES ANIMALES
On connaît quelques exemples de cellules, en
particulier dans la lignée germinale, qui communiquent entre elles par de larges orifices. Ces cellules
sont en fait «sœurs» et ces orifices représentent
des ponts cytoplasmiques persistant après une
séparation incomplète lors de la division. Les ovogonies et les spermatogonies, chez les Vertébrés,
ainsi que les cellules folliculeuses nourricières
chez certains Insectes (drosophile) présentent cette
particularité. La coordination des étapes du développement, dans le premier cas, la nécessité de
fournir rapidement de réserves à l’ovocyte, dans le
deuxième, sont à mettre en rapport avec l’existence de ces dispositifs.
2.2.3. P LASMODESMES
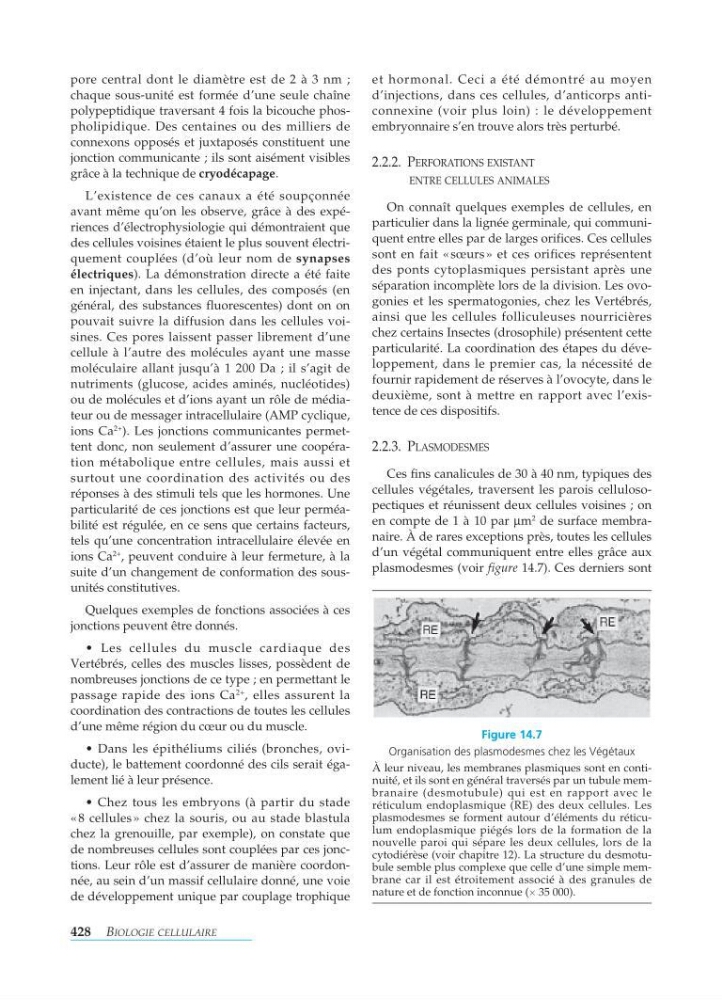
Ces fins canalicules de 30 à 40 nm, typiques des
cellules végétales, traversent les parois cellulosopectiques et réunissent deux cellules voisines ; on
en compte de 1 à 10 par µ m
2
de surface membranaire. À de rares exceptions près, toutes les cellules
d’un végétal communiquent entre elles grâce aux
plasmodesmes (voir figure 14.7). Ces derniers sont
428 B IOLOGIE CELLULAIRE
Figure 14.7
Organisation des plasmodesmes chez les Végétaux
À leur niveau, les membranes plasmiques sont en continuité, et ils sont en général traversés par un tubule membranaire (desmotubule) qui est en rapport avec le
réticulum endoplasmique (RE) des deux cellules. Les
plasmodesmes se forment autour d’éléments du réticulum endoplasmique piégés lors de la formation de la
nouvelle paroi qui sépare les deux cellules, lors de la
cytodiérèse (voir chapitre 12). La structure du desmotubule semble plus complexe que celle d’une simple membrane car il est étroitement associé à des granules de
nature et de fonction inconnue ( 35 000).