

tubuline est profondément modifiée au niveau des
kinétochores ; ceux-ci deviennent alors un lieu de
dépolymérisation rapide des microtubules, ce qui
entraîne leur raccourcissement et le mouvement
des chromatides vers les pôles. On ignore tout du
mécanisme grâce auquel, dans ces conditions, les
chromatides restent accrochées aux extrémités
instables (+) et suivent le mouvement général de
celles-ci vers les pôles ; il semble en effet difficile
de concilier une dépolymérisation tout en maintenant un accrochage solide entre microtubule et
kinétochore. On peut, de façon imagée, considérer
que le kinétochore «digère» les microtubules tout
en avançant vers le pôle.
On comprend ainsi comment les chromosomesfrères sont éloignés l’un de l’autre et comment ils
rejoignent les pôles : l’allongement du fuseau et le
raccourcissement simultané des microtubules
kinétochoriens en sont responsables. La contribution relative de ces deux mécanismes varie en fait
considérablement selon les groupes d’Eucaryotes.
Il faut enfin souligner que tous ces mouvements
n’ont rien à voir avec les systèmes contractiles
impliquant l’actine ou la myosine, puisque des
inhibiteurs spécifiques de ces protéines (anticorps,
ou drogues telles que la phalloïdine) n’ont aucun
effet sur les déplacements des chromosomes au
cours de l’anaphase.
4.2.3. L AC YTODIÉRÈSE
Cette phase, appelée aussi cytocinèse, correspond au partage du cytoplasme consécutif à la
mitose, de sorte que chaque cellule-fille hérite d’un
stock complet de molécules et d’organites.
• Rôle des filaments d’actine et de myosine
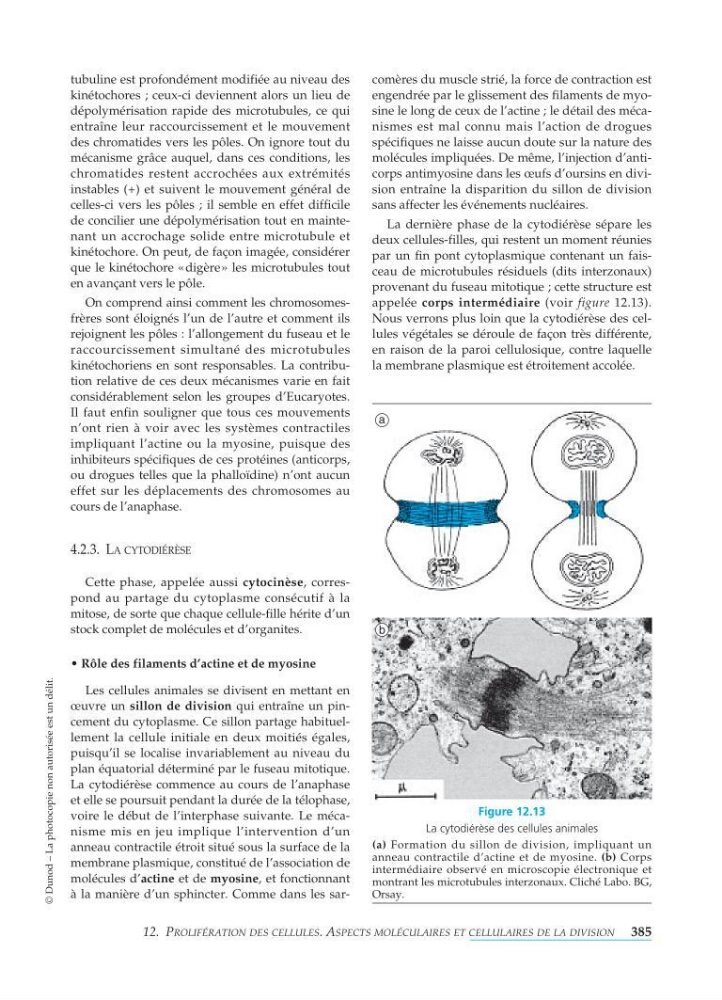
Les cellules animales se divisent en mettant en
œuvre un sillon de division qui entraîne un pincement du cytoplasme. Ce sillon partage habituellement la cellule initiale en deux moitiés égales,
puisqu’il se localise invariablement au niveau du
plan équatorial déterminé par le fuseau mitotique.
La cytodiérèse commence au cours de l’anaphase
et elle se poursuit pendant la durée de la télophase,
voire le début de l’interphase suivante. Le mécanisme mis en jeu implique l’intervention d’un
anneau contractile étroit situé sous la surface de la
membrane plasmique, constitué de l’association de
molécules d’actine et de myosine, et fonctionnant
à la manière d’un sphincter. Comme dans les sarcomères du muscle strié, la force de contraction est
engendrée par le glissement des filaments de myosine le long de ceux de l’actine ; le détail des mécanismes est mal connu mais l’action de drogues
spécifiques ne laisse aucun doute sur la nature des
molécules impliquées. De même, l’injection d’anticorps antimyosine dans les œufs d’oursins en division entraîne la disparition du sillon de division
sans affecter les événements nucléaires.
La dernière phase de la cytodiérèse sépare les
deux cellules-filles, qui restent un moment réunies
par un fin pont cytoplasmique contenant un faisceau de microtubules résiduels (dits interzonaux)
provenant du fuseau mitotique ; cette structure est
appelée corps intermédiaire (voir figure 12.13).
Nous verrons plus loin que la cytodiérèse des cellules végétales se déroule de façon très différente,
en raison de la paroi cellulosique, contre laquelle
la membrane plasmique est étroitement accolée.
12. P ROLIFÉRATION DES CELLULES.A SPECTS MOLÉCULAIRES ET CELLULAIRES DE LA DIVISION 385
© Dunod – La photocopie non autorisée est un délit.
Figure 12.13
La cytodiérèse des cellules animales
(a) Formation du sillon de division, impliquant un
anneau contractile d’actine et de myosine. (b) Corps
intermédiaire observé en microscopie électronique et
montrant les microtubules interzonaux. Cliché Labo. BG,
Orsay.
a
b