

324 B IOLOGIE CELLULAIRE
phosphate ; l’intensité de la photorespiration est
estimée à 5f ois celle de la respiration normale, la
nuit, du même tissu. Pour plus de détails, voir
l’ouvrage de Biochimie cité plus haut.
Le phosphoglycolate ainsi produit est déphosphorylé dans le stroma du chloroplaste, puis le
glycolate quitte ce dernier et gagne un peroxysome situé à proximité. Les coupes cytologiques
montrent le plus souvent, en effet, que ces deux
organites sont souvent très proches, voire contigus
au sein du hyaloplasme. Les peroxysomes des cellules vertes sont toujours très volumineux et
contiennent, comme on l’a dit plus haut, des oxydases flaviniques qui oxydent le glycolate en
glyoxylate, en présence d’O 2 . Le peroxyde d’hydrogène obtenu est immédiatement dégradé par une
catalase. Le glyoxylate est alors pris en charge par
une transaminase qui, en interagissant avec un
glutamate, le transforme en glycine. Cette dernière
passe dans une mitochondrie voisine où elle
donne du CO 2 et de la sérine, laquelle retourne
dans un peroxysome ; dans celui-ci, une nouvelle
transamination conduit à de l’hydroxypyruvate,
qui est transformé en glycérate. Enfin, ce dernier
retourne dans un chloroplaste où il rentre dans le
cycle de Calvin, après phosphorylation.
La photorespiration est donc un métabolisme
très particulier, qui met en œuvre trois organites
distincts coopérant étroitement pour consommer
de l’O 2 et produire du CO 2 , tout en consommant
de l’énergie ; son seul intérêt physiologique évident est de produire des acides aminés (glycine et
sérine) pour la synthèse protéique. Elle est également à l’origine, au sein des peroxysomes, de
l’acide oxalique qui sera finalement accumulé dans
les vacuoles de certaines cellules, sous forme de
volumineux cristaux d’oxalate de calcium (cas de
certains cactus, de l’oseille, de l’épinard, de la rhubarbe, et de nombreuses autres espèces végétales).
5.3.2. L ES GLYOXYSOMES
ET L ’ UTILISATION DES LIPIDES
Les glyoxysomes sont des peroxysomes particuliers rencontrés chez les Animaux inférieurs, les
Protistes et les Végétaux. Ils sont particulièrement
abondants dans les cellules des graines en germination des plantes oléagineuses (ricin, par exemple),
dont les réserves sont essentiellement constituées
de lipides. Outre les enzymes de la β -oxydation
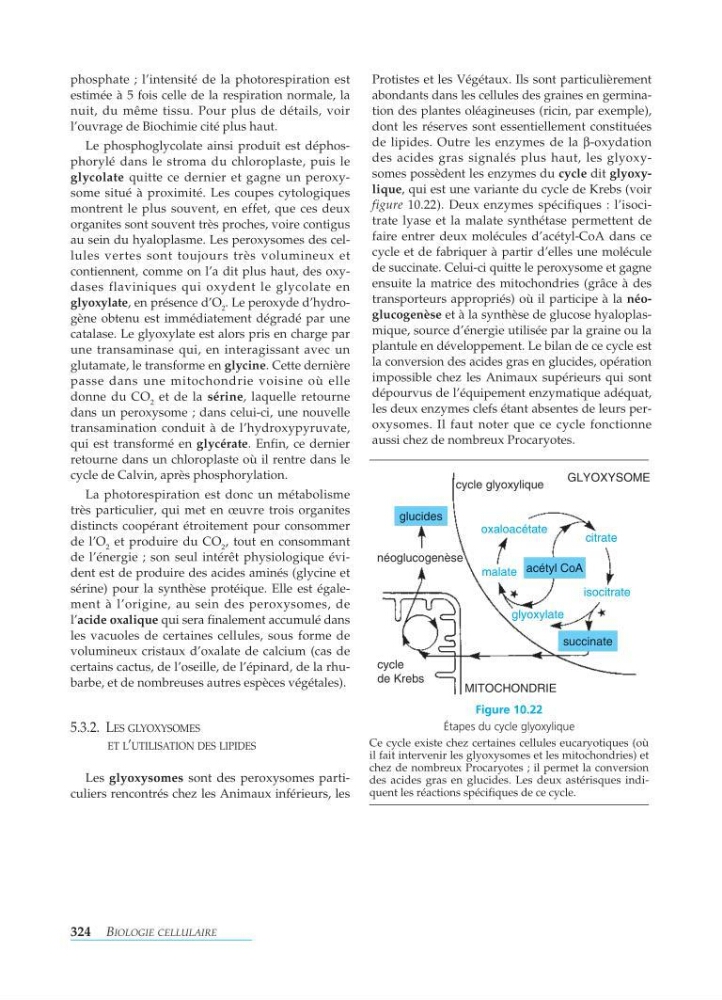
des acides gras signalés plus haut, les glyoxysomes possèdent les enzymes du cycle dit glyoxylique, qui est une variante du cycle de Krebs (voir
figure 10.22). Deux enzymes spécifiques : l’isocitrate lyase et la malate synthétase permettent de
faire entrer deux molécules d’acétyl-CoA dans ce
cycle et de fabriquer à partir d’elles une molécule
de succinate. Celui-ci quitte le peroxysome et gagne
ensuite la matrice des mitochondries (grâce à des
transporteurs appropriés) où il participe à la néoglucogenèse et à la synthèse de glucose hyaloplasmique, source d’énergie utilisée par la graine ou la
plantule en développement. Le bilan de ce cycle est
la conversion des acides gras en glucides, opération
impossible chez les Animaux supérieurs qui sont
dépourvus de l’équipement enzymatique adéquat,
les deux enzymes clefs étant absentes de leurs peroxysomes. Il faut noter que ce cycle fonctionne
aussi chez de nombreux Procaryotes.
Figure 10.22
Étapes du cycle glyoxylique
Ce cycle existe chez certaines cellules eucaryotiques (où
il fait intervenir les glyoxysomes et les mitochondries) et
chez de nombreux Procaryotes ; il permet la conversion
des acides gras en glucides. Les deux astérisques indiquent les réactions spécifiques de ce cycle.
GLYOXYSOME
MITOCHONDRIE
cycle glyoxylique
cycle
de Krebs
oxaloacétate
malate
glyoxylate
citrate
isocitrate
néoglucogenèse
glucides
succinate
acétyl CoA